 2024, Vol. 44
文章信息
- 姚钦予, 孙志高, 胡星云, 李亚瑾, 宋振阳, 贺攀霏, 夏星辰, 武慧慧, 方冠荣
- YAO Qinyu, SUN Zhigao, HU Xingyun, LI Yajin, SONG Zhenyang, HE Panfei, XIA Xingchen, WU Huihui, FANG Guanrong
- 氮负荷增强对闽江口短叶茳芏湿地植物-土壤系统氮累积与分配的影响
- Effects of enhanced nitrogen load on nitrogen accumulation and allocation in plant-soil system of Cyperus malaccensis marsh in the Minjiang estuary
- 生态学报. 2024, 44(11): 4831-4843
- Acta Ecologica Sinica. 2024, 44(11): 4831-4843
- http://dx.doi.org/10.20103/j.stxb.202307091479
-
文章历史
- 收稿日期: 2023-07-09
- 网络出版日期: 2024-03-18


2. 福建师范大学湿润亚热带生态地理过程教育部重点实验室, 福州 350117;
3. 福建闽江河口湿地生态系统国家定位观测研究站, 国家林业和草原局, 福州 350215
2. Key Laboratory of Humid Subtropical Eco-geographical Process, Fujian Normal University, Ministry of Education, Fuzhou 350117, China;
3. Wetland Ecosystem Research Station of Minjiang Estuary, National Forestry and Grassland Administration, Fuzhou 350215, China
河口湿地是响应全球气候变化最为敏感的生态系统之一[1], 其在全球氮循环中发挥着不可替代的作用。河口湿地环境复杂多变, 由此直接或间接影响着植物-土壤系统氮的分布、迁移及转化, 进而可能对近岸海域环境产生深刻影响[2]。目前, 国外关于河口湿地植物-土壤系统氮生物循环的研究主要集中于植物对有效氮养分吸收与利用[3—4]、植物氮同位素特征与环境指示[5]、残体氮养分归还[6]、植物脱氮机制[7]以及土壤氮转化的微生物过程[8—9]与非生物过程[10]等。国内在该领域也开展了诸多工作, 其研究内容多侧重于植物氮累积特征、残体氮养分归还[11—12]、土壤脱氮过程以及生物入侵对土壤氮时空分布及转化的影响[13—14]等, 但关于氮负荷增强条件下植物-土壤系统氮赋存及转化的研究还比较薄弱。
闽江河口是我国东南沿海最为典型的河口之一, 其对于维护区域生态安全至关重要[15]。除受入海径流和潮汐影响外, 闽江河口还承接着来自中上游的大量含氮物质。现有研究资料显示, 闽江河口的氮沉降量处于较高水平(3.0—3.5 g N m-2 a-1)[16], 且已超过其临界负荷量(2.0—2.5 g N m-2 a-1)[17]。近年来, 闽江河口的营养盐入海通量介于3.8×10⁴—6.1×10⁴ t[18], 氮养分负荷约21 g N m-2 a-1[19]。受氮沉降和陆源氮输入的共同影响, 闽江河口充当着外源氮的一个重要“汇”, 但这一“汇”的形成对于植物-土壤系统氮累积与分配产生的影响尚不明确。短叶茳芏(Cyperus malaccensis)是闽江河口的本地优势种, 其不仅能够净化水质、消浪固堤, 而且还可为湿地生物提供了良好的栖息环境。更为主要的是, 短叶茳芏是C4植物, 其对氮养分负荷的响应极为敏感[20]。目前, 该区湿地氮循环研究已涉及植物氮累积与残体分解归还[21]、土壤-水界面无机氮交换[22]、土壤氮赋存及其对盐度[23]、潮汐[24]或互花米草入侵的响应[25]等, 而关于氮负荷增强条件下植物-土壤系统氮累积与分配的研究还较少。为此, 本研究以该区鳝鱼滩的短叶茳芏湿地为研究对象, 探讨了氮负荷增强条件下植物-土壤系统的氮累积与分配特征。研究结果有助于明晰湿地氮生物循环对外源氮输入的响应机制, 并可为该区湿地保护提供基础数据。
1 研究区域与研究方法 1.1 研究区概况闽江河口地处我国中亚热带和南亚热带过渡区, 气候温暖湿润, 年降水量超过1380 mm, 降水集中于3—9月。研究区位于鳝鱼滩(26°00′36″—26°03′42″N, 119°34′12″—119°40′40″E)西北部, 潮汐为正规半日潮, 水文过程较为复杂。该区主要植被有短叶茳芏(C. malaccensis)、芦苇(Phragmites australis)和藨草(Scirpus triqueter)等。
1.2 研究方法 1.2.1 试验设计选择短叶茳芏为研究对象, 于2021年3—12月开展氮负荷增强模拟实验。为探讨短期氮负荷增强对植物-土壤系统氮累积与分配的影响, 本研究在2021年7月进行采样。结合现有资料, 综合考虑该区陆源氮输入和氮沉降的影响, 将氮负荷背景确定为25.0 g N m-2 a-1, 并据此设计4个氮负荷处理, 以模拟未来不同的氮负荷水平, 即:对照处理NNT(0 g N m-2 a-1)、低氮负荷处理LNT(12.5 g N m-2 a-1)、中氮负荷处理MNT(25.0 g N m-2 a-1)和高氮负荷处理HNT(75.0 g N m-2 a-1), 每个处理随机设置3个重复样地(5 m×6 m)。在考虑该区氮沉降和入海营养盐中NH4+-N和NO3--N比例的基础上[18], 将二者的比例设定为1∶3.3。试验进行时, 将NH4Cl和KNO3溶解在10 L水中, 每隔30 d左右, 在小潮日进行输氮。
1.2.2 样品采集与测定2021年7月, 在上述不同样地内, 随机设置50 cm×50 cm的样方, 采集植物和土壤样品。地上生物量采用刈割法, 同步测量株高和密度。地下生物量采用挖掘法, 将样方内的根系全部挖出, 放入细纱网袋中清洗。将植物分为根、茎、叶和立枯体, 放入烘箱中烘干, 称量后, 磨碎过筛装袋待测。采用柱状采样器采集土壤样品, 采集深度为50 cm(每10 cm一层), 共60个样品。将土壤自然风干后研磨, 过100目筛后装袋待测。
植物和土壤的全氮(TN)含量以及土壤有机碳(SOC, 加稀盐酸去除无机碳)含量采用元素分析仪(Elementar Vario MAX, 德国)测定;土壤有机质(SOM)采用其与SOC间的换算系数(0.58)进行计算[26];NH4+-N和NO3--N含量在采用2 mol/L的KCl溶液浸提后, 通过连续流动分析仪(SKALAR-SAN++, 荷兰)测定;土壤含水量和容重分别采用烘干法和环刀法测定;pH和EC分别采用HACH-sensION3(美国)和ECTestr11+(美国)原位测定;土壤粒度采用激光粒度分析仪(Master Sizer 2000, 英国)测定, 采用国际制分类。不同氮负荷处理下湿地土壤理化性质如表 1所示。
| 土层深度 Soil depth/cm |
氮负荷水平 Nitrogen load level |
含水量 Moisture content/% |
pH | 电导率 Electrical conductivity/(mS/cm) |
土壤有机质 Soil organic matter/(g/kg) |
| 0—10 | NNT | 57.99±3.68ABa | 5.81±0.15Aa | 6.18±0.10Aa | 27.03±2.19ABCa |
| LNT | 55.43±3.28ABa | 5.78±0.48Aa | 8.44±0.28Aa | 28.43±0.68Aa | |
| MNT | 55.05±3.33Ba | 6.03±0.30Aa | 8.57±0.21Ac | 29.64±1.70ACa | |
| HNT | 59.58±2.2.54Aa | 5.66±0.23Aa | 5.77±0.16Ac | 28.99±1.65ABCDa | |
| 10—20 | NNT | 52.61±6.48Ba | 5.40±0.08Ba | 5.27±0.64Aa | 21.69±2.74Ba |
| LNT | 50.69±9.93Ba | 6.04±0.17Ab | 7.72±0.74Ab | 21.78±0.30Ba | |
| MNT | 55.44±3.94Ba | 6.13±0.12Ab | 8.02±0.66Ab | 23.52±1.83Ba | |
| HNT | 56.96±4.76Aa | 5.39±0.63Aa | 6.09±0.19Aa | 25.12±1.89BCDa | |
| 20—30 | NNT | 62.13±10.88ABa | 5.77±0.21Aa | 7.66±0.77Bab | 27.94±0.16ABCa |
| LNT | 66.21±5.50Aa | 5.94±0.13Aa | 8.14±0.20Aa | 25.62±1.58ABCa | |
| MNT | 63.47±9.13ABa | 6.00±0.12Aa | 8.16±0.28Aab | 27.05±1.54ABa | |
| HNT | 56.34±5.44Aa | 5.88±0.13Aa | 6.89±0.62ABb | 24.31±0.60BDa | |
| 30—40 | NNT | 58.97±6.14ABa | 5.88±0.16Aa | 7.60±0.15Ba | 28.21±1.62ACa |
| LNT | 66.06±3.66Aa | 6.05±0.17Aa | 8.33±0.27Ab | 27.91±1.68ACa | |
| MNT | 68.47±9.69ABa | 6.10±0.21Aa | 8.39±0.35Ab | 31.09±1.16Aa | |
| HNT | 68.48±8.24Aa | 5.83±0.01Aa | 7.76±0.45Bab | 32.44±0.84Aa | |
| 40—50 | NNT | 69.53±0.23Aab | 5.99±0.05Aa | 7.96±0.73Ba | 31.73±0.27Aa |
| LNT | 60.86±4.45ABb | 5.94±0.18Aa | 8.21±0.08Aa | 27.20±0.79ACbc | |
| MNT | 76.61±9.44Aa | 5.95±0.18Aa | 8.31±0.22Aa | 29.52±0.48ACab | |
| HNT | 57.49±5.10Ab | 6.02±0.30Aa | 7.86±1.03Ba | 26.44±1.58Db | |
| NNT:对照处理No N treatment;LNT:低氮处理Low N treatment;MNT:中氮处理Medium N treatment;HNT:高氮处理High N treatment; 同列不同大写字母表示相同氮负荷处理下不同土层之间差异显著(P<0.05);同列不同小写字母表示相同土层不同氮负荷处理之间差异显著(P<0.05) | |||||
土壤氮储量参考文献[27]计算;植物不同部位氮累积系数(AFN)和氮储量参考文献[21]计算;植物TN含量的根茎比、根叶比和茎叶比参考文献[28]计算。
1.2.4 数据处理采用Origin 2022软件对数据进行处理与作图;运用SPSS 25软件对数据进行Pearson相关分析、单因素方差分析、多因素方差分析和逐步线性回归分析, 显著性水平设定为P<0.05;运用Canoco 5.0软件对数据进行冗余(RDA)分析。
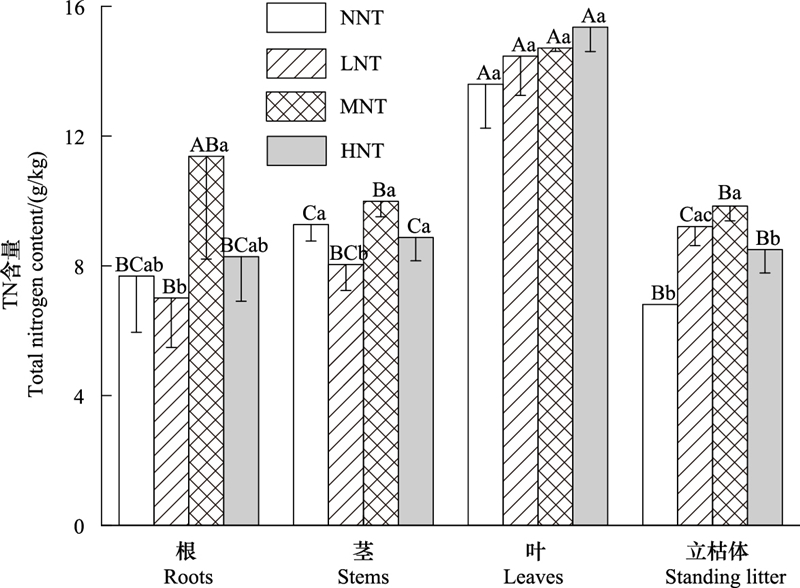
2 结果与分析 2.1 氮负荷增强对湿地植物氮累积及运转的影响 2.1.1 植物氮含量分布尽管氮负荷增强条件下植物不同器官的TN含量均发生了明显变化, 但其整体均表现为叶>立枯体>茎>根, 且叶的TN含量显著高于其他器官(P<0.05)(图 1)。不同处理下根的TN含量表现为MNT>HNT>NNT>LNT(P<0.05), 而茎的TN含量表现为MNT>NNT>HNT>LNT(P<0.05)。相比NNT, 根和茎的TN含量在MNT分别增加了48.11%和7.73%, 而在LNT分别降低了8.81%和13.30%。不同处理下叶的TN含量表现为HNT>MNT>LNT>NNT(P>0.05), 而立枯体的TN含量表现为MNT>LNT>HNT>NNT(P<0.05)。相比NNT, 叶的TN含量在LNT、MNT和HNT的增幅分别为6.36%、8.20%和12.94%, 而立枯体的TN含量在三种处理下的增幅分别为35.19%、44.49%和24.82%。
|
| 图 1 氮负荷增强条件下湿地植物不同部分全氮(TN)含量 Fig. 1 Effects of enhanced nitrogen load on TN contents in tissues of marsh plants NNT:对照处理No N treatment;LNT:低氮处理Low N treatment;MNT:中氮处理Medium N treatment;HNT:高氮处理High N treatment; 不同大写字母表示相同氮负荷水平不同部分之间差异显著(P<0.05), 不同小写字母表示相同部分不同氮负荷水平之间差异显著(P<0.05) |
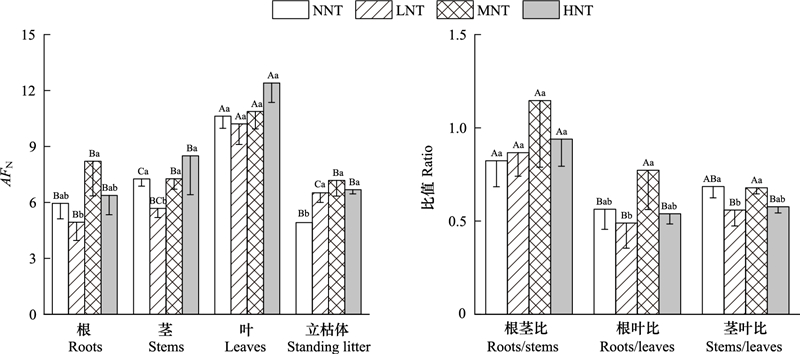
不同氮负荷处理下茎和叶的AFN整体均表现为HNT>MNT>NNT>LNT(图 2), 但仅茎的AFN在处理间存在显著差异(P<0.05)。根的AFN表现为MNT>HNT>NNT>LNT(P<0.05), 而立枯体的AFN表现为MNT>HNT>LNT>NNT(P<0.05)。相比NNT, LNT、MNT和HNT下的根茎比均呈增加趋势, 增幅分别为5.32%、39.22%和14.09%;而茎叶比均呈降低趋势, 降幅分别为18.42%、0.94%和15.73%。与NNT相比, 根叶比在LNT和HNT下分别降低了13.19%和4.38%, 在MNT下则增加了37.01%。
|
| 图 2 氮负荷增强条件下湿地植物的氮累积系数(AFN)以及根茎比、根叶比、茎叶比 Fig. 2 Effects of enhanced nitrogen load on AFN values and root/shoot ratio, root/leaf ratio or stem/leaf ratio for TN contents in tissues of marsh plants as affected by enhanced nitrogen load |
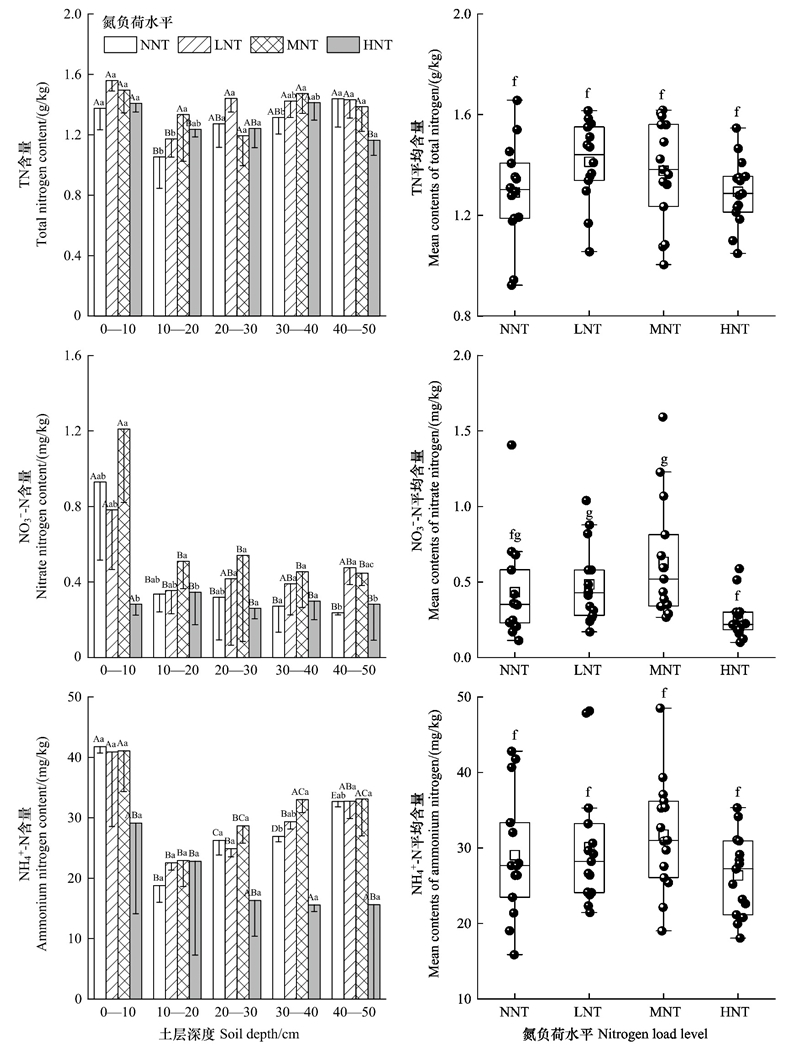
氮负荷增强条件下土壤氮含量的分布特征发生了明显改变(图 3)。不同处理下(LNT、MNT、HNT)的TN含量在0—10 cm、10—20 cm和30—40 cm土层均高于NNT(P<0.05), 在20—30 cm和40—50 cm土层则以LNT或NNT较高, 而在MNT和HNT较低, 但仅10—20 cm和30—40 cm土层的TN含量在不同处理间存在显著差异(P < 0.05)。NH4+-N含量在0—10 cm土层以NNT最高, 在10—20 cm、20—30 cm、30—40 cm和40—50 cm土层以MNT最高, 而在20—30 cm、30—40 cm和40—50 cm土层均以HNT最低, 但仅30—40 cm和40—50 cm土层的NH4+-N含量在不同处理间存在显著差异(P<0.05)。NO3--N含量在0—10 cm和20—30 cm土层均以MNT最高, 而HNT最低;但在10—20 cm、30—40 cm和40—50 cm土层, 其值以MNT或LNT较高, 而NNT最低。除20—30和30—40 cm土层外, 其他土层的NO3--N含量在不同处理间均存在显著差异(P<0.05)。
在垂直方向上, NNT和LNT的TN含量均呈先降低后增加趋势, 并均于10—20 cm土层最低。与之不同, MNT和HNT的TN含量整体均呈先降低后增加而后再降低变化。NNT、LNT和MNT的NH4+-N含量均呈先降低后增加变化, 且三者均于10—20 cm土层取得最低值。与之相比, HNT的NH4+-N含量随土层深度增加呈降低趋势。NNT和MNT的NO3--N含量垂直变化特征相近, 二者均呈降低趋势;LNT和HNT的NO3--N含量垂直变化特征正好相反, 前者呈先降低后增加变化, 后者则呈先增加后降低趋势。不同处理下的TN含量整体表现为LNT>MNT>HNT>NNT, 而NH4+-N和NO3--N含量均表现为MNT>LNT>NNT>HNT, 其中NO3--N含量在不同处理间存在显著差异(P<0.05)(图 3)。LNT、MNT和HNT的TN含量相较于NNT分别增加了9.44%、6.71%和0.24%。另外, 相比NNT, LNT和MNT的NH4+-N含量分别增加了3.57%和9.37%, NO3--N含量分别增加了11.99%和46.50%;但HNT的NH4+-N和NO3--N含量分别降低了9.26%和40.77%。多因素方差分析显示, 土层深度对TN、NH4+-N和NO3--N含量均存在极显著影响(P<0.01), 而氮负荷水平对NH4+-N和NO3--N含量均存在极显著(P<0.01)或显著影响(P<0.05)(表 2)。
|
| 图 3 氮负荷增强对湿地土壤TN、NH4+-N和NO3--N含量垂直分布及其平均含量的影响 Fig. 3 Effects of enhanced nitrogen load on vertical distributions of TN, NH4+-N and NO3--N contents and their mean values in marsh soil 不同大写字母表示相同氮负荷水平不同部分之间差异显著(P<0.05), 不同小写字母表示相同部分不同氮负荷水平之间差异显著(P<0.05) |
| 项目 Items |
自由度 df |
TN | NH4+-N | NO3--N | |||||
| F | P | F | P | F | P | ||||
| 氮负荷水平Nitrogen load level | 3 | 2.246 | 0.099 | 3.770 | 0.018* | 7.077 | 0.001** | ||
| 土层深度Soil depth | 4 | 5.827 | 0.001** | 22.049 | 0.000** | 11.145 | 0.000** | ||
| 氮负荷水平×土层深度 Nitrogen load level×Soil depth |
12 | 1.362 | 0.226 | 1.740 | 0.095 | 0.676 | 0.763 | ||
| **P<0.01, *P<0.05 | |||||||||
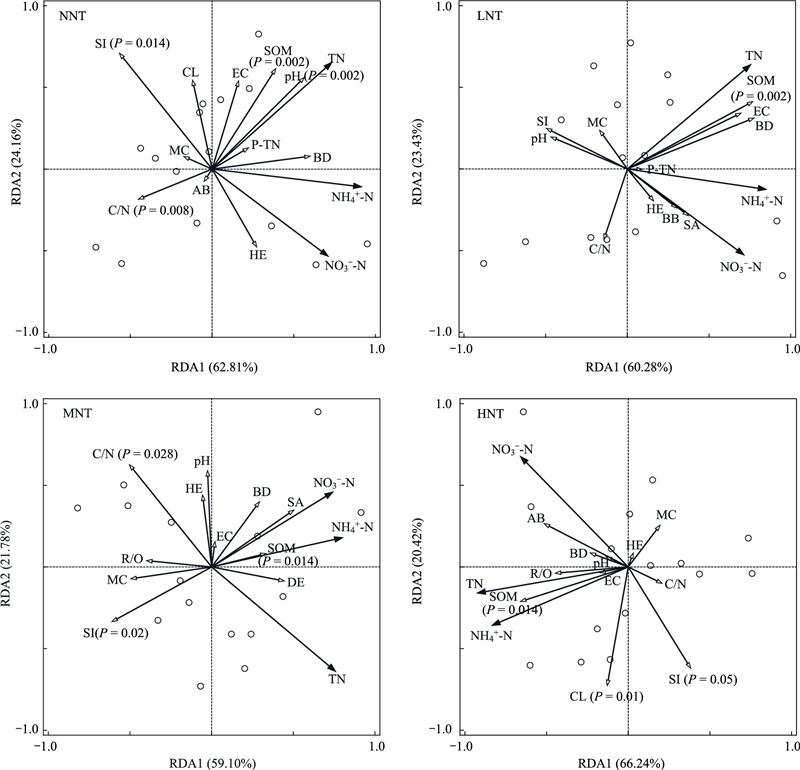
冗余分析(RDA)显示(图 4), NNT提取的RDA 1和RDA 2的累计贡献率达86.97%。RDA 1(62.81%)代表了粉粒(SI)、碳氮比(C/N)和pH;RDA 2(24.16%)主要代表了土壤有机质(SOM)。土壤TN、NH4+-N和NO3--N含量均与RDA 1轴存在较强的相关性, 其中起主导作用的是SI和pH, 二者的解释贡献率分别为33.80%和39.30%。LNT提取的RDA 1和RDA 2的累计贡献率达83.71%。其中, RDA 1(60.28%)代表了SOM、电导率(EC)和容重(BD);RDA 2(23.43%)主要代表了C/N。土壤TN、NH4+-N和NO3--N含量均与RDA 1轴存在较强的相关性, 其中SOM是对TN、NH4+-N和NO3--N含量产生影响的主导因子, 其解释贡献率为44.30%。MNT提取的RDA 1和RDA 2的累计贡献率达80.88%。其中, RDA 1(59.10%)代表了SI、SOM和C/N;RDA 2(21.78%)主要代表了pH。土壤TN、NH4+-N和NO3--N含量均与RDA 1轴存在较强的相关性, 其中起主导作用的是C/N和SOM, 二者的解释贡献率分别为28.70%和28.70%。HNT提取的RDA 1和RDA 2的累计贡献率达86.66%。RDA 1(66.24%)主要代表了SOM;RDA 2(20.42%)代表了CL和SI。土壤TN和NH4+-N含量与RDA 1轴均存在较强的相关性, 而NO3--N含量与RDA 2轴存在较强的相关性, 其中起主导作用的是SOM, 解释贡献率为31.90%。
|
| 图 4 氮负荷增强条件下湿地土壤TN、NH4+-N和NO3--N含量与环境因子及植物生态特征的冗余分析 Fig. 4 Redundancy analyses for soil TN, NH4+-N and NO3--N contents with environmental factors and plant ecological traits as affected by enhanced nitrogen load EC:电导率Electrical conductivity; AB:地上生物量Aboveground biomass;BB:地下生物量Belowground biomass;R/O:根冠比Root/shoot ratio;CL:黏粒Clay;SI:粉粒Silt;SA:砂粒Sand;MC:含水量Moisture content;HE:株高Height;DE:密度Density;BD:容重Bulk density;P-TN:植物全氮Total nitrogen in plants; SOM: 土壤有机质Soil organic matter; C/N: 碳氮比Carbon/Nitrogen ratio |
不同氮负荷处理下植物-土壤系统的氮储量总体表现为LNT>MNT>NNT>HNT, 其中土壤氮储量的占比均超过92%(表 3)。相较于NNT、MNT和HNT, LNT的土壤氮储量最高, 但仅LNT和HNT间存在显著差异(P < 0.05)。LNT、MNT和HNT的植物亚系统氮储量显著低于NNT(P<0.05), 其值相比NNT分别降低了28.18%、16.55%和44.87%。茎作为植物亚系统的氮库主体, 其在4种处理下的占比分别为62.20%、54.31%、44.68%和48.74%。相较于NNT, 不同处理下茎、叶和立枯体的氮储量均呈降低趋势, 其中LNT、MNT和HNT的茎或立枯体氮储量显著低于NNT(P<0.05)。相较于NNT, 根的氮储量在LNT和MNT均呈增加趋势, 而在HNT则呈降低变化。整体而言, HNT的根、茎和叶的氮储量降幅均较大, 其值相比NNT分别降低了11.36%、50.99%和51.57%;LNT的立枯体氮储量降幅最大, 其值相比于NNT降低了47.49%。
| 氮负荷水平 Nitrogen load levels |
项目 Items |
根 Roots/(g/m2) |
地上部分 Aboveground parts |
立枯体 Standing litters/(g/m2) |
植物亚系统 Plant subsystems/(g/m2) |
土壤亚系统 (0—50cm) Soil subsystems/(g/m2) |
植物-土壤系统 Plant-soil system/(g/m2) |
|
| 茎 Stems/(g/m2) |
叶 Leaves/(g/m2) |
|||||||
| NNT | 氮储量 | 8.32±1.19Ca | 24.01±5.03Aa | 0.46±0.21Ba | 5.81±0.00BCa | 38.60±6.43a | 496.79±41.43ab | 535.39±47.86ab |
| 占比/% | *21.55 | * 62.20 | * 1.19 | * 15.06 | #7.21 | # 92.79 | # 100.00 | |
| LNT | 氮储量 | 9.26±5.75Aa | 15.05±1.64Ab | 0.35±0.09Ba | 3.05±0.28Bb | 27.71±7.76ab | 540.65±25.69a | 568.36±33.45a |
| 占比/% | * 33.42 | *54.31 | * 1.26 | * 11.01 | # 4.88 | # 95.12 | # 100.00 | |
| MNT | 氮储量 | 14.00±3.17Aa | 14.39±5.37Ab | 0.26±0.12Ba | 3.55±0.87Bb | 32.21±9.53a | 520.13±20.52ab | 552.34±30.05ab |
| 占比/% | * 43.49 | * 44.68 | * 0.81 | * 11.02 | # 5.83 | # 94.17 | # 100.00 | |
| HNT | 氮储量 | 7.37±2.21Ca | 11.76±2.73Ab | 0.22±0.01Ba | 4.78±0.22Ca | 24.13±5.17b | 490.05±7.29b | 514.18±12.46b |
| 占比/% | * 30.54 | * 48.74 | * 0.91 | * 19.81 | # 4.69 | # 95.31 | # 100.00 | |
| 同列不同大写字母(A, B, C)表示相同氮负荷处理下不同指标之间差异显著(P<0.05);不同小写字母(a, b)表示相同指标不同氮负荷处理之间差异显著(P<0.05);*占植物亚系统的百分比;#占植物-土壤系统的百分比 | ||||||||
本研究表明, 氮负荷增强条件下土壤TN含量发生了明显改变, 其在低氮和中氮处理下相比对照处理均明显增加, 但在高氮处理下增幅不大(图 3)。胡星云等对黄河口湿地的研究也表明, 外源氮输入增加了碱蓬(Suaeda salsa)土壤的TN含量[29]。Wang等对辽河口湿地的研究亦表明, 适量氮添加可增加碱蓬土壤的氮含量, 而过量氮添加则会降低土壤氮含量[30]。本研究中, 导致低氮和中氮处理下土壤TN含量增加的原因可能与其对地表残体分解的促进作用较强, 进而导致归还土壤的氮养分较高有关。实际上, 现有研究的确显示, 适量氮输入可促进地表残体分解及养分的归还[11], 而较高水平的氮输入则对其促进作用较弱, 甚至表现为抑制作用[31]。Gerdol等对阿尔卑斯东南部泥炭藓(Sphagnum)的研究显示, 高水平氮输入下的泥炭藓分解速率有所衰减[32]。贺攀霏等对闽江河口的研究亦发现, 低氮和中氮处理有利于芦苇残体的分解, 而高氮处理则对其产生一定的抑制作用[31]。另外, 相比对照处理, 低氮和中氮处理下的植物地上生物量均呈降低趋势(表 4), 由此使得其对土壤氮养分的需求量可能不大, 从而使得更多的氮养分富集于土壤中(表 3), 导致TN含量较高。与之不同, 高氮处理下植物的地上和地下生物量较其他处理(尤其是对照处理)均显著降低(表 4), 说明其对氮养分的需求量不大, 加之该处理下残体的氮养分归还量可能并不高, 由此使得其TN含量相比对照处理增幅不大。
| 氮负荷水平 Nitrogen load level |
株高 Height/cm |
密度 Density/(株/m2) |
地下生物量 Belowground biomass/(g/m2) |
地上生物量 Aboveground biomass/(g/m2) |
立枯体 Standing litter/(g/m2) |
根冠比 Root/shoot ratio |
|
| 茎 Stem |
叶 Leaf |
||||||
| NNT | 148.44±7.85a | 1802.67±259.04a | 1112.99±140.23a | 2600.85±348.38a | 32.96±7.18a | 516.11±169.68a | 0.42±0.03a |
| LNT | 131.77±6.17bc | 1269.33±92.53b | 1256.63±290.28a | 2012.85±113.16a | 23.73±1.90a | 332.11±17.98a | 0.62±0.20a |
| MNT | 129.17±4.86b | 1029.33±202.88b | 1303.74±275.05a | 1424.85±113.16b | 19.47±3.74a | 358.88±41.49a | 0.90±0.33a |
| HNT | 138.44±10.14c | 1013.33±174.87b | 925.06±297.07a | 738.85±113.17b | 14.48±0.24b | 563.68±180.87a | 1.23±0.15a |
本研究还表明, 相比对照处理, 土壤中的NH4+-N和NO3--N含量在低氮和中氮处理下均明显增加, 但在高氮处理下均显著降低(图 3)。导致中低氮处理下NH4+-N和NO3--N含量增加的原因主要两方面:一是与两种处理下NH4+-N和NO3--N的输入量相对较高有关, 因为输入到湿地中的氮, 在经过植物吸收、淋失及化学转化后, 仍然有相当一部分持留在土壤中[33]。二是可能与较低的氮负荷水平促进了土壤氮的矿化过程有关, 由此导致土壤中的NH4+-N和NO3--N含量较高。白洁冰等对青藏高原高寒湿地的研究亦表明, 氮添加显著提高了土壤氮矿化速率[34]。陈红等对长白山苔原的研究还发现, 低氮处理更有利于促进氮的矿化过程[35]。本研究中, 导致高氮处理下NH4+-N和NO3--N含量显著降低的原因可能主要与该处理下的脱氮过程强烈有关。已有研究表明, 较高的氮输入水平可促进土壤的脱氮作用[36]。刘晴晴等的研究也表明, 湿地土壤在高氮输入水平下的脱氮速率较高, 此时土壤中的NH4+-N和NO3--N损失明显[37]。氮输入对脱氮作用的影响还与氮输入形态有关。NO3--N可为脱氮作用提供硝酸盐基质, 其含量较高的土壤, 脱氮速率一般较高。Cartaxana等对欧洲塔霍河盐沼沉积物的研究发现, NO3--N的输入为反硝化作用提供了充足的反应底物, 明显促进了反硝化速率[38]。Muñoz-Hincapié等对波多黎各红树林沉积物的研究还发现, 随着NH4+-N含量的增加, 反硝化作用亦增强, 因为NH4+-N是反硝化的间接底物来源[39]。马红亮等的研究亦表明, 较高水平的NH4+-N输入不但可增强NH3挥发, 而且还可导致NO2-、NO3-淋失[40]。另外, 湿地土壤中某些光能营养型、无机化能营养型的硫氧化细菌在厌氧或淹水条件下可利用硝酸盐作为电子受体, 硫化物为电子供体来驱动自养反硝化过程, 从而造成氮的气态损失[41]。由于河口湿地土壤中硫含量丰富[28], 故其干湿交替的氧化-还原环境使得土壤中的S2O32-、S2-和HS-极易与硝酸盐结合而被自养反硝化菌消耗, 并释放大量的N2, 由此导致脱氮过程强烈[42]。实际上, 本研究中低氮处理下的较高NH4+-N和NO3--N含量亦可部分解释二者较高的TN含量, 而高氮处理下NH4+-N和NO3--N含量的降低则可部分解释其TN含量的较低增幅(图 3)。本研究中, NH4+-N和NO3--N含量在低氮和中氮处理下的明显增加以及二者在高氮处理下的显著降低还可能与微生物介导下的氮转化过程有关, 因为现有研究的确发现氮添加对土壤细菌活性、多样性、丰度和组成均可产生显著影响[30, 43]。一般而言, 适量的氮添加有利于微生物的生长, 而这可提高土壤氮矿化相关酶的活性[44—45], 导致有机氮矿化过程活跃, 由此导致无机氮含量增加明显;而较高水平的氮添加通常会增强与脱氮过程有关的微生物活性[30], 导致脱氮过程强烈, 从而使得无机氮含量下降明显。
本研究亦表明, 除高氮处理外, 对照及中低氮处理下的TN、NH4+-N和NO3--N含量均在0—10 cm土层最高, 而在10—30 cm土层较低。这一方面可能与试验期间的氮输入有关, 因为输入的外源氮主要集中于表层土壤;另一方面可能与上述提到的中低氮负荷水平对地表残体分解的促进作用有关, 由此可能导致一部分氮归还浅层土壤。导致高氮处理下表层土壤中TN、NH4+-N和NO3--N含量较低的原因一方面与上述提到的该处理对地表残体分解及氮归还的促进作用不明显有关;另一方面与该处理下表层土壤的脱氮过程较为强烈有关。本研究中, 导致10—30 cm土层TN、NH4+-N和NO3--N含量较低的原因可能与植物根系对氮的吸收利用有关。由于短叶茳芏的根系主要集中在0—30 cm深度, 而在此深度范围内, 根系将从土壤中吸收的氮养分不断转运至地上器官[46], 由此导致土壤氮含量呈降低变化。值得注意的是, 对照及中低氮处理下较深土层(30—50 cm)的TN和NH4+-N含量均呈增加趋势, 原因可能与其受SOM分布的影响有关。相关分析显示, 不同氮处理下SOM与TN或NH4+-N均存在正相关关系, 且其在低氮和高氮处理下的相关性均达到显著水平(P<0.05)(表 5)。本研究中, 不同氮处理下较深土层的SOM含量整体较高(表 1), 由此导致较深土层中的TN和NH4+-N含量亦较高。实际上, 前述RDA分析的确显示, SOM是影响土壤TN和NH4+-N含量分布的主要因子。另外, 对照及中低氮处理下深层土壤中的较高TN和NH4+-N含量可能也与氮在较好水分条件下的物理运移有关[47], 因为无机氮在土壤中垂直淋失能力的减弱可导致其在深层土壤中不断累积。本研究中, 对照及中低氮负荷处理下表层土壤中的TN和NH4+-N含量均较高(图 3), 由此使得二者垂直淋失到深层土壤中的量可能也较高。与之不同, 高氮处理下的NH4+-N含量在0—50 cm土层呈降低变化, 这一方面与上述提到的高氮处理下土壤脱氮过程强烈, 由此导致其表层土壤中的NH4+-N含量本身不高有关(图 3);另一方面, 由于NH4+-N带正电荷, 易被土壤胶体吸附, 由此使得淋失到深层土壤中的量可能并不高, 从而导致其含量随土层深度增加而降低。尽管不同氮负荷处理下NO3--N含量的垂直变化较为复杂, 但其整体以表层土壤(0—10 cm)最高, 而在其他土层(10—50 cm)均较低。表层土壤中的较高NO3--N含量主要与本研究中输入的较高NO3--N(NH4+-N与NO3--N输入比例为1∶3.3)有关;而其他土层较低的NO3--N含量一方面可能与植物根系的吸收利用有关, 另一方面与NO3-不易被土壤胶体吸附而极易淋失到更深土层有关。由于本研究的时期为7月份, 此间降水充沛, 故土壤中的NO3--N的确有可能随水分垂直淋失至更深层次的土壤中, 由此导致其在土壤剖面中的含量整体较低。
| 氮负荷水平 Nitrogen load level |
项目 Item |
黏粒 Clay |
粉粒 Silt |
砂砾 Sand |
容重 Bulk density |
含水量 Moisture content |
pH | 电导率 Electrical conductivity |
有机质 Soil organic matter |
碳氮比 Carbon/Nitrogen ratio |
| NNT | TN | 0.249 | 0.038 | -0.109 | 0.449 | -0.002 | 0.735** | 0.420 | 0.589* | -0.585* |
| NH4+-N | -0.128 | -0.578* | 0.469 | 0.633* | -0.324 | 0.553* | 0.200 | 0.496 | -0.118 | |
| NO3--N | -0.409 | -0.797** | 0.722** | 0.313 | -0.041 | 0.025 | -0.260 | -0.215 | -0.440 | |
| LNT | TN | 0.171 | -0.219 | 0.107 | 0.795** | -0.003 | -0.108 | 0.828** | 0.815** | -0.465 |
| NH4+-N | -0.026 | -0.444 | 0.337 | 0.598* | -0.113 | -0.610* | 0.434 | 0.673** | 0.123 | |
| NO3--N | -0.208 | -0.492 | 0.431 | 0.408 | -0.291 | -0.396 | 0.322 | 0.279 | -0.017 | |
| MNT | TN | 0.021 | -0.274 | 0.196 | -0.078 | -0.318 | -0.380 | -0.130 | 0.132 | -0.830** |
| NH4+-N | 0.016 | -0.459 | 0.334 | 0.460 | -0.451 | 0.027 | 0.205 | 0.518* | -0.126 | |
| NO3--N | -0.420 | -0.679** | 0.639* | 0.280 | -0.369 | 0.299 | -0.040 | 0.099 | -0.216 | |
| HNT | TN | 0.170 | -0.358 | 0.209 | 0.186 | -0.039 | 0.132 | -0.011 | 0.716** | -0.224 |
| NH4+-N | 0.427 | -0.003 | -0.136 | 0.177 | -0.420 | 0.076 | 0.318 | 0.560* | -0.093 | |
| NO3--N | -0.391 | -0.646** | 0.605* | 0.215 | 0.000 | 0.128 | 0.135 | 0.274 | -0.193 | |
| **P<0.01, *P<0.05 | ||||||||||
本研究表明, 不同氮负荷处理下植物各器官的TN含量整体表现为叶>茎>根, 说明叶是氮的重要累积器官。相关研究也得到类似结果[48—49]。已有研究显示, 叶是植物光合作用的重要器官, 是新陈代谢最旺盛的部位, 氮作为叶绿素和光合作用各种酶的组成元素, 其可参与并影响光合作用过程;而根作为氮的重要输出库, 其可为植物地上部分生长提供充足的氮养分[50]。由于本研究的时期为7月份, 正值短叶茳芏的生长高峰期, 此间地上器官对氮的需求量大, 为满足植物的光合需求, 大量氮养分由根转运到叶中, 导致叶中的TN含量较高, 而根中的TN含量较低。这正好可为不同氮处理下叶的较高AFN以及较低的根叶比和茎叶比所佐证(图 2)。
本研究还表明, 除低氮处理下根的TN含量以及高低氮处理下茎的TN含量低于对照处理外, 其他处理下各器官的TN含量均高于对照处理(图 1)。其中, 低氮处理下根中较低的TN含量主要与该处理土壤中的较低矿质态氮(NH4+-N+NO3--N)含量有关(图 3), 而茎中较低的TN含量可能与根部氮供给能力不高以及供给地上的氮被大量转运至叶中有关, 这正好可为低氮处理下茎的较低AFN以及较低的茎叶比所证实(图 2)。另外, 高氮处理下茎中较低的TN含量主要与该处理下根和茎将从土壤中吸收的氮大量转移至叶中有关, 而这可为该处理下叶的较高AFN以及较低的根叶比、茎叶比所证实(图 2)。与之不同, 中氮处理下植物不同器官的TN含量均较高(图 1), 而土壤中的氮含量(尤其是矿质态氮)也较高(图 3), 说明该处理可能缓解了植物的氮限制状况, 为植物生长提供了充足的氮养分。实际上, 中氮处理下较高的地下生物量(表 4)以及较高的根叶比、根茎比(根茎比>1)(图 2)在一定程度上亦可部分佐证上述解释。
本研究亦表明, 土壤是氮库的主体, 其占植物-土壤系统氮储量的比例均超过92%;茎是植物亚系统氮库的主体, 其占植物亚系统氮储量的比例超过44%(表 3)。高氮处理下植物亚系统以及不同器官(根、茎、叶)的氮储量均最低, 但立枯体的氮储量显著高于中低氮处理(P<0.05), 原因可能与高氮负荷条件不利于植物生长有关。实际上, 与对照及中低氮处理相比, 高氮负荷条件下植物的株高、密度、地下生物量、地上不同器官生物量的确发生了明显降低(表 4)。前述氮硫耦合作用不但有利于脱氮过程的进行, 导致土壤TN、NH4+-N和NO3--N含量的降低(图 3), 而且还可导致大量含硫气体的释放(例如H2S)[51], 而较高浓度的含硫气体往往会导致植物根系腐烂、叶片枯萎等, 从而对植物生长产生毒害效应[28, 52]。可能正是如此, 导致高氮处理下的立枯体量以及立枯体氮储量显著高于其他处理, 而其植物亚系统以及不同器官的氮储量也因地上和地下生物量的明显降低而整体不高。与对照处理相比, 中低氮处理下植物株高、密度、地上生物量的降低以及根冠比的升高在一定程度上亦可部分说明氮负荷增强条件下挥发性含硫气体释放可能对植物生长产生的不利影响。此外, 较高的氮负荷量也可能对植物生长产生不利影响, 因为过量氮添加产生的高浓度NH4+-N可导致植物体内代谢紊乱和激素失衡, 而这会对植物产生一定的毒害作用, 从而影响其养分吸收的能力, 进而抑制其生长发育[53]。孙大成等对滇西北湖泊湿地水葱(Scirpus validus)的研究亦发现, 氮添加降低了水葱的根冠比, 而过低的根冠比又会降低根系吸收养分的能力以及根系向叶片的养分输送, 从而导致植物营养失衡, 抑制其生长[54]。本研究中, 相对于对照处理, 中低氮处理下短叶茳芏的株高、密度、立枯体量、茎和叶生物量以及植物亚系统氮储量均降低, 而地下生物量、根冠比和根部氮储量均明显增加(表 3, 表 4), 说明植物在两种处理下可能将更多的氮优先分配给根系, 通过采取拓展地下空间和增加地下生物量的方式来适应中低氮负荷环境。Hough-snee等的研究亦发现, 薹草(Carex obnupta)在营养丰富的条件下可通过增加地下生物量的方式来保持自身的竞争力[55]。与中低氮处理相比, 高氮处理下短叶茳芏的株高、根冠比、立枯体量以及其氮储量均明显增加, 但其密度、地下生物量、地上生物量以及植物亚系统氮储量均明显降低(表 3, 表 4), 说明植物在高氮处理下极有可能通过增强“自疏效应”, 采取拓展地上空间(增加株高)的方式来适应高氮负荷环境。白江珊对三江平原湿地的研究也表明, 持续的氮输入可导致毛果苔草(Carex lasiocarpa)种群密度的降低, 且其地上器官的发育也受到明显抑制[56]。
4 结论(1) 不同氮负荷处理下土壤TN、NH4+-N和NO3--N含量均发生了明显改变。相比对照处理, 中低氮处理下的TN、NH4+-N和NO3--N含量均明显增加;高氮处理下的TN含量增幅不大, 而其NH4+-N和NO3--N含量均显著降低。
(2) 不同氮负荷处理下土壤氮含量的垂直分布亦发生了明显变化。除高氮处理外, 中低氮处理下的TN、NH4+-N和NO3--N含量均在表层最高。不同氮处理下土壤的TN和NH4+-N含量分布主要受SOM的影响, 而NO3--N含量分布主要受植物吸收和淋失的影响。
(3) 氮负荷增强条件下植物不同器官的TN含量整体表现为叶>茎>根。除低氮处理下根的TN含量以及高低氮处理下茎的TN含量低于对照处理外, 其他处理下各器官的TN含量均高于对照处理。
(4) 不同氮负荷处理下植物-土壤系统的氮储量整体以中低氮处理最高, 而高氮处理最低, 土壤是氮库的主体;高氮处理下植物不同器官的氮储量均最低, 但其立枯体氮储量显著高于中低氮处理, 原因可能与高氮负荷条件不利于植物生长有关。
(5) 短叶茳芏在中低氮负荷条件下可能将更多的氮优先分配给根系, 通过拓展地下空间和提高地下生物量的方式来适应环境;但在高氮负荷条件下, 其可能通过增强“自疏效应”, 通过拓展地上空间的方式来适应环境。
| [1] |
宋振阳, 孙志高, 贺攀霏, 胡星云, 夏星辰, 李亚瑾. 氮负荷增强对闽江河口芦苇湿地表层土壤磷赋存形态动态变化的影响. 环境科学学报, 2023, 43(11): 314-327. |
| [2] |
Zhang Z S, Song X L, Lu X G, Xue Z S. Ecological stoichiometry of carbon, nitrogen, and phosphorus in estuarine wetland soils: influences of vegetation coverage, plant communities, geomorphology, and seawalls. Journal of Soils and Sediments, 2013, 13(6): 1043-1051. DOI:10.1007/s11368-013-0693-3 |
| [3] |
Villazán B, Salo T, Brun F G, Vergara J J, Pedersen M F. High ammonium availability amplifies the adverse effect of low salinity on eelgrass Zostera marina. Marine Ecology Progress Series, 2015, 536: 149-162. DOI:10.3354/meps11435 |
| [4] |
Caleb C C. Black Mangrove recovery from freeze disturbance accelerated by nutrient enrichment. Texas A&M University-Corpus Christi ProQuest Dissertations Publishing, 2023.
|
| [5] |
Cecchetti A R, Sytsma A, Stiegler A N, Dawson T E, Sedlak D L. Use of stable nitrogen isotopes to track plant uptake of nitrogen in a nature-based treatment system. Water Research X, 2020, 9: 100070. DOI:10.1016/j.wroa.2020.100070 |
| [6] |
Marquez M A, Fierro-Cabo A, Cintra-Buenrostro C E. Can ecosystem functional recovery be traced to decomposition and nitrogen dynamics in estuaries of the Lower Laguna Madre, Texas?. Restoration Ecology, 2017, 25(4): 618-628. DOI:10.1111/rec.12469 |
| [7] |
Cornwell J C, Owens M S, Staver L W. Nutrient retention and release in eroding Chesapeake Bay tidal wetlands. JAWRA Journal of the American Water Resources Association, 2022, 58(6): 940-957. DOI:10.1111/1752-1688.12984 |
| [8] |
Luvizotto D M, Araujo J E, De Cassia P, Silva M, Dias A C F, Kraft B, Tegetmeye H, Strous M, Andreote F D. The rates and players of denitrification, dissimilatory nitrate reduction to ammonia (DNRA) and anaerobic ammonia oxidation (anammox) in mangrove soils. Anais Da Academia Brasileira de Ciências, 2019, 91(suppl 1): e20180373. DOI:10.1590/0001-3765201820180373 |
| [9] |
Vaccare J, Meselhe E, White J R. The denitrification potential of eroding wetlands in Barataria Bay, LA, USA: implications for river reconnection. Science of the Total Environment, 2019, 686: 529-537. DOI:10.1016/j.scitotenv.2019.05.475 |
| [10] |
Bowen J L, Spivak A C, Bernhard A E, Fulweiler R W, Giblin A E. Salt marsh nitrogen cycling: where land meets sea. Trends in Microbiology, 2023. |
| [11] |
陈冰冰, 孙志高, 孙文广, 胡星云. 外源氮持续输入对相应氮梯度下碱蓬残体分解及硫养分释放的影响. 生态学报, 2019, 39(8): 2872-2882. |
| [12] |
张广帅, 蔡悦荫, 吴婷婷, 闫吉顺, 孙家文, 宫玮, 姜峰, 王权明. 生态修复区盐地碱蓬群落碳、氮储量及其影响因素分析——以辽河三角洲大凌河口湿地为例. 海洋环境科学, 2023, 42(1): 46-54. |
| [13] |
牟晓杰, 孙志高, 刘兴土. 黄河口翅碱蓬湿地土壤氮的季节变化. 干旱区资源与环境, 2013, 27(1): 114-119. |
| [14] |
刘程. 长江口脱氮-硝化耦合与非耦合过程及其影响机制[D]. 上海: 华东师范大学, 2021.
|
| [15] |
宋振阳, 孙志高, 师自香, 贺攀霏, 胡星云, 夏星辰, 李亚瑾, 武慧慧. 外源氮输入对闽江河口芦苇湿地土壤磷形态赋存特征的影响. 生态学报, 2023, 43(14): 5902-5915. DOI:10.5846/stxb202207091958 |
| [16] |
Yu G R, Jia Y L, He N P, Zhu J X, Chen Z, Wang Q F, Piao S L, Liu X J, He H L, Guo X B, Wen Z, Li P, Ding G A, Goulding K. Stabilization of atmospheric nitrogen deposition in China over the past decade. Nature Geoscience, 2019, 12(6): 424-429. DOI:10.1038/s41561-019-0352-4 |
| [17] |
段雷, 郝吉明, 谢绍东, 周中平. 用稳态法确定中国土壤的硫沉降和氮沉降临界负荷. 环境科学, 2002, 23(2): 7-12. |
| [18] |
中国海洋信息网. 中国海洋生态环境公报, 2018, (2012—2017), http://www.nmdis.org.cn/
|
| [19] |
Mou X J, Liu X T, Sun Z G, Tong C, Lu X R. Short-term effect of exogenous nitrogen on N2O fluxes from native and invaded tidal marshes in the Min River Estuary, China. Wetlands, 2019, 39(1): 139-148. DOI:10.1007/s13157-018-1060-3 |
| [20] |
陈伟霖, 缪绅裕, 陶文琴, 龙连娣, 戴文坛, 刘志群, 陈学梅, 易祖盛. 珠海淇澳与广州南沙湿地3种植物稳定碳氮同位素组成比较. 海洋环境科学, 2018, 37(1): 38-42. |
| [21] |
师自香, 孙志高, 胡星云, 陈冰冰, 李亚瑾, 厉彦哲, 王晓颖. 闽江河口芦苇和短叶茳芏空间扩展对湿地植物-土壤系统氮分布及转运特征的影响. 环境科学学报, 2022, 42(9): 301-311. |
| [22] |
林贤彪, 林啸, 颜燕燕, 何诗, 蒋利玲, 曾从盛. 闽江口盐淡水湿地沉积物-水界面无机氮交换通量特征. 水土保持学报, 2013, 27(5): 260-266. |
| [23] |
孙启元, 李家兵, 赖月婷, 张党玉, 邱文康, 吴春山. 不同盐度对闽江河口沉积物硝化作用的影响. 应用生态学报, 2018, 29(4): 1313-1320. |
| [24] |
侯贯云, 翟水晶, 乐晓青, 仝川. 潮汐对闽江口感潮湿地孔隙水及土壤中硅、氮浓度的影响. 应用生态学报, 2017, 28(1): 337-344. |
| [25] |
牟晓杰, 刘兴土, 仝川, 万斯昂, 王纯. 氮输入和互花米草入侵下闽江河口潮滩土壤甲烷氧化速率研究. 湿地科学, 2017, 15(4): 601-607. |
| [26] |
鲁如坤. 土壤农业化学分析方法. 北京: 中国农业科技出版社, 2000.
|
| [27] |
孙志高. 三江平原沼泽湿地氮循环. 北京: 科学出版社, 2014.
|
| [28] |
夏星辰, 孙志高, 胡星云, 李亚瑾, 师自香, 宋振阳, 贺攀霏, 武慧慧. 氮负荷增强对闽江河口湿地植物-土壤系统硫分布及其转运特征的影响. 环境科学学报, 2023, 43(6): 483-493. |
| [29] |
胡星云, 孙志高, 张党玉, 孙文广, 王伟, 王苗苗, 陈冰冰. 外源氮输入对黄河口碱蓬湿地土壤碳氮含量动态的影响. 水土保持学报, 2017, 31(6): 204-211. |
| [30] |
Wang S Y, Liu Y, Chen L, Yang H Y, Wang G G, Wang C T, Dong X. Effects of excessive nitrogen on nitrogen uptake and transformation in the wetland soils of Liaohe Estuary, northeast China. Science of the Total Environment, 2021, 791: 148228. DOI:10.1016/j.scitotenv.2021.148228 |
| [31] |
贺攀霏, 孙志高, 师自香, 胡星云, 宋振阳, 李亚瑾, 陈冰冰, 厉彦哲. 氮负荷增强对闽江河口芦苇残体分解及其养分释放的影响. 生态学报, 2023, 43(17): 7097-7108. DOI:10.20103/j.stxb.202208032209 |
| [32] |
Gerdol R, Petraglia A, Bragazza L, Iacumin P, Brancaleoni L. Nitrogen deposition interacts with climate in affecting production and decomposition rates in Sphagnum mosses. Global Change Biology, 2007, 13(8): 1810-1821. DOI:10.1111/j.1365-2486.2007.01380.x |
| [33] |
胡星云. 氮负荷增强对黄河口新生湿地氮生物循环过程与循环状况的影响[D]. 福州: 福建师范大学, 2018.
|
| [34] |
白洁冰, 徐兴良, 宋明华, 何永涛, 蒋婧, 石培礼. 温度和氮素输入对青藏高原三种高寒草地土壤碳矿化的影响. 生态环境学报, 2011, 20(5): 855-859. |
| [35] |
陈红, 唐杨, 童跃伟, 朱琪, 周旺明, 周莉, 于大炮, 代力民. 长白山苔原带土壤碳、氮矿化对氮沉降的响应. 应用生态学报, 2019, 30(5): 1536-1542. |
| [36] |
Bouwman A F. Nitrogen oxides and tropical agriculture. Nature, 1998, 392(6679): 866-867. DOI:10.1038/31809 |
| [37] |
刘晴晴, 曾从盛, 张林海, 高灯州. 氮输入条件下闽江河口沼泽土壤的反硝化速率. 湿地科学, 2016, 14(3): 361-367. |
| [38] |
Cartaxana P, Lloyd D. N2, N2O and O2Profiles in a Tagus estuary salt marsh. Estuarine, Coastal and Shelf Science, 1999, 48(6): 751-756. DOI:10.1006/ecss.1998.0475 |
| [39] |
Muñoz-Hincapié M, Morell J M, Corredor J E. Increase of nitrous oxide flux to the atmosphere upon nitrogen addition to red mangroves sediments. Marine Pollution Bulletin, 2002, 44(10): 992-996. DOI:10.1016/S0025-326X(02)00132-7 |
| [40] |
马红亮, 王杰, 高人, 尹云锋, 孙杰. 施用铵态氮对森林土壤硝态氮和铵态氮的影响. 土壤, 2011, 43(6): 910-916. |
| [41] |
Wu S B, Kuschk P, Wiessner A, Müller J, Saad R A B, Dong R J. Sulphur transformations in constructed wetlands for wastewater treatment: a review. Ecological Engineering, 2013, 52: 278-289. DOI:10.1016/j.ecoleng.2012.11.003 |
| [42] |
Chen B B, Sun Z G. Effects of nitrogen enrichment on variations of sulfur in plant-soil system of Suaeda salsa in coastal marsh of the Yellow River Estuary, China. Ecological Indicators, 2020, 109: 105797. DOI:10.1016/j.ecolind.2019.105797 |
| [43] |
Weng X, Wang M Y, Sui X, Frey B, Liu Y N, Zhang R, Ni H, Li M H. High ammonium addition changes the diversity and structure of bacterial communities in temperate wetland soils of northeastern China. Microorganisms, 2023, 11(8): 2033. DOI:10.3390/microorganisms11082033 |
| [44] |
Ramirez K S, Craine J M, Fierer N. Consistent effects of nitrogen amendments on soil microbial communities and processes across biomes. Global Change Biology, 2012, 18(6): 1918-1927. DOI:10.1111/j.1365-2486.2012.02639.x |
| [45] |
Kim M, Jeong S Y, Yoon S J, Cho S J, Kim Y H, Kim M J, Ryu E Y, Lee S J. Aerobic denitrification of Pseudomonas putida AD-21 at different C/N ratios. Journal of Bioscience and Bioengineering, 2008, 106(5): 498-502. DOI:10.1263/jbb.106.498 |
| [46] |
何涛, 孙志高, 李家兵, 高会, 范爱连. 闽江河口芦苇与短叶茳芏空间扩展植物-土壤系统硫含量变化特征. 生态学报, 2018, 38(5): 1607-1618. DOI:10.5846/stxb201703060374 |
| [47] |
Bai J H, Deng W, Zhu Y M, Wang Q G. Spatial variability of nitrogen in soils from land/inland water ecotones. Communications in Soil Science and Plant Analysis, 2004, 35(5/6): 735-749. |
| [48] |
杨永兴, 王世岩, 何太蓉, 田昆, 杨波. 三江平原典型湿地生态系统生物量及其季节动态研究. 中国草地, 2002, 24(1): 1-7. |
| [49] |
孙志高, 刘景双, 于君宝. 三江平原不同群落小叶章氮素的累积与分配. 应用生态学报, 2009, 20(2): 277-284. |
| [50] |
Mazid M, Khan T A, Mohammad F. Response of crop plants under sulphur stress tolerance: a holistic approach. Journal of Stress Physiology & Biochemistry, 2011, 7(3): 23-57. |
| [51] |
Mizuno O, Li Y Y, Noike T. The behavior of sulfate-reducing bacteria in acidogenic phase of anaerobic digestion. Water Research, 1998, 32(5): 1626-1634. DOI:10.1016/S0043-1354(97)00372-2 |
| [52] |
Ausma T, De Kok L J. Atmospheric H2S: impact on plant functioning. Frontiers in Plant Science, 2019, 10: 743. DOI:10.3389/fpls.2019.00743 |
| [53] |
Yin X L, Zhang J, Guo Y Y, Fan J L, Hu Z. Physiological responses of Potamogeton crispus to different levels of ammonia nitrogen in constructed wetland. Water, Air, & Soil Pollution, 2016, 227(2): 65. |
| [54] |
孙大成, 郭雪莲, 解成杰, 余磊朝, 许静. 氮输入对沼泽湿地植物生长和氮吸收的影响. 生态环境学报, 2013, 22(8): 1317-1321. |
| [55] |
Hough-Snee N, Nackley L L, Kim S H, Ewing K. Does plant performance under stress explain divergent life history strategies? The effects of flooding and nutrient stress on two wetland sedges. Aquatic Botany, 2015, 120: 151-159. DOI:10.1016/j.aquabot.2014.03.001 |
| [56] |
白江珊. 生境变化对草本沼泽湿地优势植物萌蘖和生长的影响[D]. 长春: 中国科学院大学(中国科学院东北地理与农业生态研究所), 2021.
|