 2023, Vol. 43
文章信息
- 陈铭, 黄林娟, 黄贵, 刘昕宇, 薛跃规
- CHEN Ming, HUANG Linjuan, HUANG Gui, LIU Xinyu, XUE Yuegui
- 广西大石围天坑群草本植物多样性及其生态位变化规律
- Diversity and niche characteristics of herbaceous plants in Dashiwei Tiankeng Group, Guangxi
- 生态学报. 2023, 43(7): 2831-2844
- Acta Ecologica Sinica. 2023, 43(7): 2831-2844
- http://dx.doi.org/10.5846/stxb202204251137
-
文章历史
- 收稿日期: 2022-04-25
- 网络出版日期: 2022-11-19


2. 广西师范大学广西漓江流域景观资源保育与可持续利用重点实验室, 桂林 541006;
3. 广西师范大学生命科学学院, 桂林 541006
2. Guangxi Key Laboratory of Landscape Resources Conservation and Sustainable Utilization in Lijiang River Basin Guilin, Guangxi Normal University, Guilin 541006, China;
3. College of Life Sciences, Guangxi Normal University, Guilin 541006, China
物种多样性是森林生态系统的重要特征[1], 丰富的物种多样性能提高群落的稳定性[2], 促进生态系统功能的发挥[3];生态位理论定量地反映了物种之间、物种与环境之间的相互关系[4], 能够揭示群落中物种组成及其在生态系统中的功能地位[5], 在解释群落构建与生物多样性维持机制、群落演替等方面应用前景广阔[6—7]。物种多样性与生态位的运用, 对维持生态系统平衡起着至关重要的作用[8]。林下植被作为森林生态系统平稳运行的有序参与者, 其在提高森林多样性[9]、促进森林演替发展[10]、促进森林间养分循环[11]、维持生态系统稳定性[12]等方面发挥着不可忽视的作用。尤其是草本植物因其所占的生态位宽度较小, 生长、发育和丰富程度易受外界环境的影响[13], 而喀斯特天坑作为一种深陷宽度和深度均超过100 m的特大型喀斯特负地形[14], 底部的生境与外界环境相互独立, 草本植物对天坑脆弱生境的响应将更为敏感, 具有重要的指示作用[15]。因此研究天坑森林群落中草本植物多样性和生态位可以更好认识天坑群落的组成、结构和功能, 反映群落及其环境的相互关系, 同时对保护生物资源和森林生态系统健康的评估具有重要的意义。
目前, 世界上已发现的天坑约300个, 中国境内的天坑数量占世界天坑总数的一半以上, 被誉为“世界喀斯特天坑王国”[16]。广西乐业大石围天坑群数量众多、规模巨大、分布密集[17], 为世界第一大天坑群, 且天坑内特殊的水热条件, 构成了其独特的生态环境, 孕育了最为完好、结构稳定的天坑森林植物群落[18]。天坑负地形差异大, 根据天坑口部投影面积(S)与底部投影面积(B)的比值, 可将天坑划分为3个不同发育的时期, 即初期(倒置漏斗型S/B < 1)、中期(井筒型S/B≈1)和后期(漏斗型S/B>1), 不同发育时期植物群落结构的差异也较大[19]。对天坑植物的研究主要集中在群落植物区系[20]、群落结构与组成[21—22]、天坑森林物种多样性[23—24]、种间关系[25]、化学计量特征[26]和天坑地貌与植被关系研究[27]等。但对天坑植物多样性研究主要从垂直[28]或水平[29]梯度上探究植物群落的结构和组成, 对不同发育时期天坑草本植物生态位和多样性的研究较少。本文以广西大石围天坑群中不同发育时期天坑草本群落为研究对象, 通过探讨不同发育时期天坑草本多样性和生态位特征的研究, 以期回答以下科学问题:(1)不同发育时期天坑的草本植物群落组成、多样性及生态习性是否存在差异;(2)随着天坑的发育, 优势草本之间的生态位特征是否发生较大的变化, 从而揭示不同发育时期草本植物对环境资源的响应及利用机制, 为保护天坑生态环境和生物多样性资源提供重要科学的依据, 同时也为未来全球变暖下喀斯特生境植物的响应机制提供一定的参考。
1 研究区域与研究方法 1.1 研究区概况大石围天坑群(106°21′49″—106°49′37″E, 24°51′50″—24°56′06″N)位于广西壮族自治区百色市乐业县, 贵州高原南缘向广西盆地过渡的斜坡地带。该区干湿季分明、雨量充沛(5—10月), 年平均降水量1140 mm, 年平均蒸发量1105 mm, 年均温16.6℃, 年平均日照时间1467 h, 是典型的亚热带季风湿润气候区。天坑坑底集中分布于海拔1100—1200 m之间, 海拔相差较大;土壤以砂岩掺杂的石灰土为主, pH一般为中性或偏碱性[30]。天坑群所处区域以中亚热带常绿、落叶阔叶混交林和亚热带常绿阔叶林为主, 樟科(Lauraceae)、无患子科(Sapindaceae)、蔷薇科(Rosaceae)、漆树科(Anacardiaceae)和壳斗科(Fagaceae)等为主要建群科。在天坑独特的生境中, 植物种类丰富多样, 孕育了绿花杓兰(Cypripedium henryi)、石生黄堇(Corydalis saxicola)、金丝李(Garcinia paucinervis)、香木莲(Manglietia aromatica)和掌叶木(Handeliodendron bodinieri)等国家珍稀濒危保护植物。
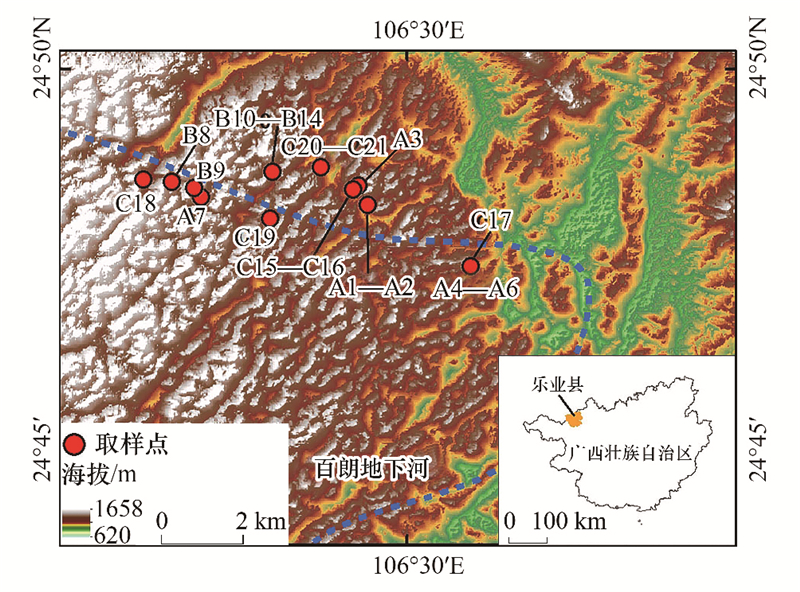
1.2 样地设置根据天坑的发育情况, 采用空间代替时间的方法, 发育初期选取天坑内洞穴及玫瑰大厅;发育中后期选取中期代表性天坑(罗家、苏家和神木), 后期代表性天坑(大石围、大曹、穿洞、邓家坨、流星);各布置7个20 m×20 m的典型样地, 共计21个样地(图 1), 计测样地的经纬度、海拔、坡度、坡向和郁闭度等指标, 计测样地内胸径(DBH)≥1 cm的乔灌木个体的名称、胸径、多度、高度及冠幅。并在研究样地中沿对角线确定8个1 m×1 m的草本样方, 共168个草本样方, 计测草本样方内所有草本的名称、高度和盖度。样地详细概况如下(表 1):
|
| 图 1 研究区及典型样地位置 Fig. 1 Research area and typical sample location |
| 样地 Plot |
地点 Site |
经度 Longitude |
纬度 Latitude |
海拔 Altitude/m |
坡度 Slope/(°) |
坡向 Aspect/(°) |
郁闭度 Crown density |
形态特征 Morphological character |
群落组成 Community composition |
| A1 | 穿洞走廊 | 106°29′27.34″ | 24°48′11.81″ | 1232 | 35 | All | 100 | 天坑内洞穴 | 短齿楼梯草+变异鳞毛蕨 |
| A2 | 穿洞走廊 | 106°29′27.04″ | 24°48′11.29″ | 1250 | 15 | All | 100 | 天坑内洞穴 | 贵州鼠李+岩樟 |
| A3 | 穿洞半月洞 | 106°29′20.94″ | 24°48′26.12″ | 1200 | 20 | All | 100 | 天坑内洞穴 | 香木莲+球核荚蒾 |
| A4 | 玫瑰大厅西 | 106°30′50.73″ | 24°47′21.55″ | 1180 | 10 | S | 100 | 倒漏斗型天坑 | 板蓝+深绿卷柏 |
| A5 | 玫瑰大厅东 | 106°30′50.73″ | 24°47′21.55″ | 1175 | 20 | W | 100 | 倒漏斗型天坑 | 板蓝+深绿卷柏 |
| A6 | 玫瑰大厅口 | 106°30′50.78″ | 24°47′21.65″ | 1190 | 30 | WN | 100 | 倒漏斗型天坑 | 星毛鸭脚木+野独活 |
| A7 | 大石围中洞 | 106°27′09.33″ | 24°48′20.38″ | 1260 | 25 | All | 100 | 天坑内洞穴 | 变异鳞毛蕨+长圆楼梯草 |
| B8 | 罗家坑底 | 106°27′10.01″ | 24°48′29.00″ | 1250 | 35 | All | 85 | 井筒型天坑 | 山胡椒+乌岗栎 |
| B9 | 苏家坑底 | 106°27′07.12″ | 24°48′27.28″ | 1290 | 20 | All | 85 | 井筒型天坑 | 灰岩润楠+掌叶木 |
| B10 | 神木坑底 | 106°28′13.42″ | 24°48′38.39″ | 1247 | 35 | All | 90 | 井筒型天坑 | 灰岩润楠+广西槭 |
| B11 | 神木西北峰 | 106°28′04.27″ | 24°48′42.38″ | 1321 | 45 | WS | 80 | 井筒型天坑 | 化香树+粉叶润楠 |
| B12 | 神木北侧腰 | 106°28′09.55″ | 24°48′39.99″ | 1263 | 10 | ES | 75 | 井筒型天坑 | 短叶黄杉+化香树 |
| B13 | 神木西侧腰 | 106°28′07.06″ | 24°48′37.66″ | 1283 | 15 | W | 85 | 井筒型天坑 | 掌叶木+长梗冬青 |
| B14 | 神木坑底 | 106°28′11.28″ | 24°48′36.77″ | 1249 | 35 | All | 85 | 井筒型天坑 | 岩樟+掌叶木 |
| C15 | 穿洞坑腰 | 106°29′13.00″ | 24°48′25.01″ | 1275 | 50 | EW | 85 | 漏斗型天坑 | 短叶黄杉 |
| C16 | 穿洞坑底 | 106°29′17.02″ | 24° 48′26.69″ | 1150 | 60 | S | 95 | 漏斗型天坑 | 掌叶木+贵州琼楠 |
| C17 | 大曹坑底 | 106°30′32.84″ | 24°47′22.81″ | 1173 | 20 | All | 75 | 漏斗型天坑 | 掌叶木+黄果厚壳桂 |
| C18 | 大石围西峰 | 106°26′29.58″ | 24°48′30.37″ | 1387 | 35 | E | 100 | 漏斗型天坑 | 化香树+乌岗栎 |
| C19 | 邓家坨坑底 | 106°28′11.38″ | 24°48′02.24″ | 1172 | 45 | All | 85 | 漏斗型天坑 | 南酸枣+川钓樟 |
| C20 | 流星坑底 | 106°28′49.10″ | 24°48′39.92″ | 1100 | 35 | All | 85 | 漏斗型天坑 | 南酸枣+掌叶木 |
| C21 | 流星坑腰 | 106°28′40.00″ | 24°48′42.76″ | 1163 | 25 | WN | 70 | 漏斗型天坑 | 川钓樟+西南桦 |
| A1—A7:发育初期;B8—B14:发育中期;C15—C21:发育后期;All:平地;S/W/N/E:方位 | |||||||||
本研究采用重要值作为评价草本植物相对重要性的综合指标, 客观反映样方内草本的优势程度。根据样方内调查的草本植物数据, 计测各样地内不同草本的重要值, 计测各发育时期不同草本的重要值。以Shannon-Wiener多样性指数(H)、Simpson优势度指数(H′)、Pielou′s均匀度指数(J)和Patrick丰富度指数(D)来综合评价大石围天坑群草本群落的物种多样性, 并依据重要值大小, 选取各发育时期重要值排名前十五的优势草本, 采用Shannon-Wiener指数B(SW)值和Levins指数B(L)值测定优势草本的生态位宽度, 采用Schoener生态位相似性指数(Cik)和Pianka生态位重叠指数(Oik)测定优势草本间的生态位相似性和生态位重叠程度。
1.3.1 重要值

|
(1) Patrick丰富度指数:

|
(2) Shannon-Wiener物种多样性指数:
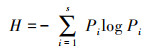
|
(3) Simpson优势度指数:
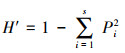
|
(4) Pielou′s均匀度指数:

|
式中, Pi为草本i的重要值, S为物种数。
1.3.3 生态位宽度生态位宽度采用Shannon-Wiener和Levins指数[31], 计测公式如下:
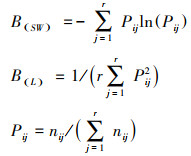
|
式中, B(SW)为草本i的Shannon-Wiener生态位宽度指数, 值域为[0, lnr];B(L)为草本i的Levins生态位宽度指数, 值域为[1, r];Pij代表草本i在第j资源位上的重要值和草本i在全部资源水平上的重要值的比例;nij为草本i在第j资源位的重要值;r为样方总数。
1.3.4 生态位相似和重叠采用Schoener生态位相似性指数(Cik)和Pianka生态位重叠指数(Oik)测定优势草本间的生态位相似性和生态位重叠程度, 公式如下[32]:
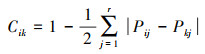
|
式中, Cik为草本i和k的生态位相似性系数, Cik=Cki, 值域为[0, 1], 其值越大(小)表示生态位相似程度越高(低); Pij和Pkj分别是草本i和k在资源位j上的重要值。
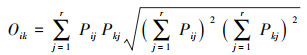
|
式中, Oik为草本i和k的生态位重叠值, 值域为[0, 1], 其值越大(小)表示生态位重叠程度越高(低); Pij和Pkj分别是草本i和k在资源位j上的重要值。
1.3.5 物种间相对高度差的定义草本植物高度一般大于80 cm称为高大草本[33]。本研究定义2种草本之间的相对高度差大于80 cm, 则认为草本植株高度相差较大, 即分层现象。计测如下:
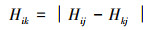
|
式中, Hik为草本i和k的相对高度差, 其值越大表示物种间的株高相差越大; Hi和Hk分别是草本i和k在资源位j上的平均株高。
1.4 数据处理与分析采用Excel 2010对天坑群内各样方的数据进行整理, 计算草本重要值和多样性指数, 运用SPSS 22.0的单因素方差分析(one-way ANOVA)和最小显著差异法分析(LSD), 比较不同发育时期天坑草本植物多样性差异;使用R 4.0.4的spaa包中的niche.width和niche.overlap函数进行计算不同发育时期优势草本的生态位宽度、生态位相似性比例和生态位重叠程度。本文使用SigmaPlot 12.5软件绘制所有图形, 样地物种信息参考《广西植物志》和《中国植物志》, 并通过查询中国植物智(http://www.iplant.cn/)确定。
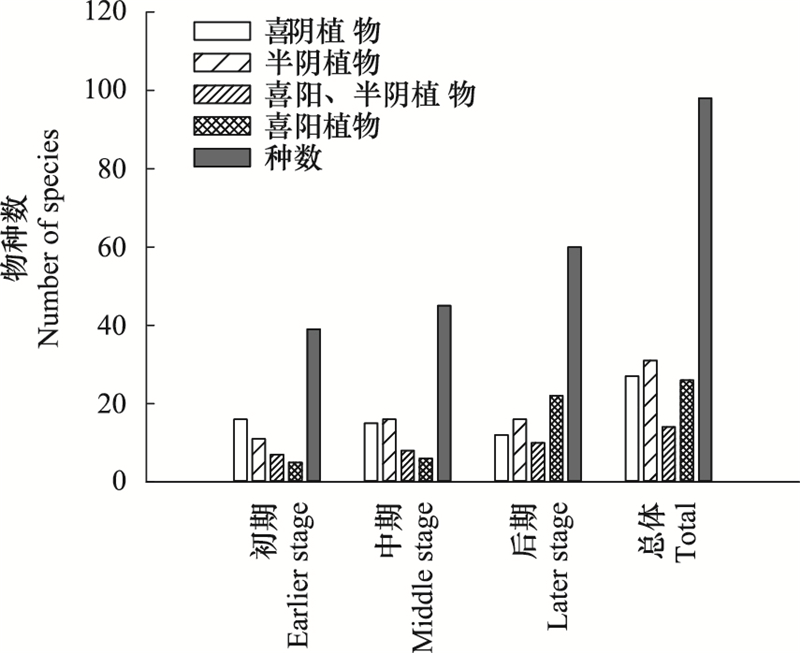
2 结果与分析 2.1 大石围天坑群草本群落物种组成广西大石围天坑群调查样地共记录到草本植物98种, 隶属34科71属, 其中, 初期天坑20科32属39种, 中期天坑20科35属45种, 后期天坑28科48属60种。图 2结果显示, 不同发育时期调查样地中草本群落组成数目由大到小的顺序为:后期天坑>中期天坑>初期天坑。后期天坑草本植物的物种数远远超过发育中期和初期, 中期天坑略高于初期天坑。初期天坑以喜阴植物为主, 占主导地位, 喜阳植物稀少;中期天坑, 半阴植物增加且物种数最多, 略超过喜阴植物;后期天坑, 喜阳植物物种数迅速上升, 成为天坑主要植物, 但喜阴植物物种数占比仍然不小。从表 2总体来看, 鳞毛蕨科(11种)、荨麻科(8种)、凤尾蕨科(8种)、菊科(7种)、水龙骨科(6种)、禾本科(5种)、天门冬科(5种)、蹄盖蕨科(5种)和爵床科(4种)是天坑内的优势科分别占总种数的11.2%、8.2%、8.2%、7.1%、6.1%、5.1%、5.1%、5.1%和4.1%。从单科来看, 鳞毛蕨科、凤尾蕨科、荨麻科在各发育时期物种数和排序都最高;随着天坑的发育, 菊科和禾本科、天门冬科物种数及排序呈上升趋势, 并占据优势地位;水龙骨科、虎耳草科的物种数及排序呈下降趋势。总之, 随着天坑发育, 喜阴植物优势地位逐渐被喜阳植物替代, 后期天坑的物种数最为丰富;菊科和禾本科物种数呈上升趋势, 但鳞毛蕨科、凤尾蕨科和荨麻科仍然是天坑草本层重要的优势科。
|
| 图 2 不同发育时期不同生态习性的草本植物的物种数 Fig. 2 Species of herbaceous plants with different ecological habits in different development stages |
| 排序 Rank |
发育时期 Developmental stages |
初期 Earlier stage |
中期 Middle stage |
后期 Later stage |
|||||||
| 科 Family |
种数 Species |
科 Family |
种数 Species |
科 Family |
种数 Species |
科 Family |
种数 Species |
||||
| 1 | 鳞毛蕨科Dryopteridaceae | 11 | 鳞毛蕨科Dryopteridaceae | 6 | 鳞毛蕨科Dryopteridaceae | 7 | 鳞毛蕨科Dryopteridaceae | 6 | |||
| 2 | 荨麻科Urticaceae | 8 | 凤尾蕨科Pteridaceae | 5 | 荨麻科Urticaceae | 6 | 荨麻科Urticaceae | 6 | |||
| 3 | 凤尾蕨科Pteridaceae | 8 | 荨麻科Urticaceae | 4 | 水龙骨科Polypodiaceae | 6 | 菊科Asteraceae | 6 | |||
| 4 | 菊科Asteraceae | 7 | 爵床科Acanthaceae | 2 | 凤尾蕨科Pteridaceae | 4 | 凤尾蕨科Pteridaceae | 5 | |||
| 5 | 水龙骨科Polypodiaceae | 6 | 禾本科Poaceae | 2 | 天门冬科Asparagaceae | 3 | 禾本科Poaceae | 5 | |||
| 6 | 禾本科Poaceae | 5 | 莎草科Cyperaceae | 2 | 铁角蕨科Aspleniaceae | 2 | 天门冬科Asparagaceae | 4 | |||
| 7 | 天门冬科Asparagaceae | 5 | 卷柏科Selaginellaceae | 2 | 虎耳草科Saxifragaceae | 2 | 爵床科Acanthaceae | 3 | |||
| 8 | 蹄盖蕨科Athyriaceae | 5 | 菊科Asteraceae | 2 | 菊科Asteraceae | 2 | 水龙骨科Polypodiaceae | 2 | |||
| 9 | 爵床科Acanthaceae | 4 | 蹄盖蕨科Athyriaceae | 2 | 蹄盖蕨科Athyriaceae | 2 | 蹄盖蕨科Athyriaceae | 2 | |||
| 10 | 虎耳草科Saxifragaceae | 3 | 茜草科Rubiaceae | 2 | 爵床科Acanthaceae | 1 | 金星蕨科Thelypteridaceae | 2 | |||
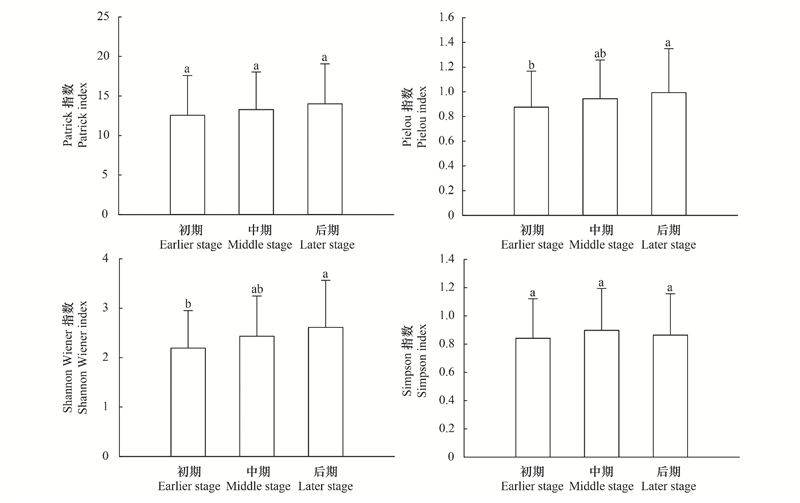
由图 3可知, 初期天坑与后期天坑的Pielou′s均匀度指数和Shannon-Wiener多样性指数有显著差异(P < 0.05), 后期天坑显著高于初期天坑。Patrick丰富度指数和Simpson优势度指数在不同发育时期差异均不显著。综上表明, 随天坑发育草本植物物种数逐渐增多, 物种分布更为均匀。
|
| 图 3 不同发育时期草本层生物多样性指数 Fig. 3 Biodiversity index of herb layer at different development stages 不同小写字母表示草本植物多样性在不同发育时期间差异显著(P < 0.05) |
根据168个草本样方的调查数据, 分别计算不同发育时期内所有草本植物的重要值。由表 3可知, 在初期天坑, 板蓝(Strobilanthes cusia)、短齿楼梯草(Elatostema brachyodontum)、水苎麻(Boehmeria macrophylla)、变异鳞毛蕨(Dryopteris varia)、深绿卷柏(Selaginella doederleinii)等物种重要值较大, 喜阴植物占据重要地位;在中期天坑, 板蓝、椭圆叶冷水花(Pilea elliptilimba)、短齿楼梯草、友水龙骨(Goniophlebium amoenum)、江南星蕨(Neolepisorus fortunei)等物种重要值较大, 喜阴植物依然占据重要地位, 喜阳植物重要值提高;在后期天坑, 接骨草(Sambucus javanica)、板蓝、毛轴蕨(Pteridium revolutum)等物种重要值较大, 喜阴植物重要值下降, 稍高于喜阳植物。在排序前十五的优势植物中, 板蓝、短齿楼梯草和深绿卷柏这三种喜阴植物在不同发育时期均有分布且具有优势;水苎麻在初期和中期天坑群落占重要地位, 椭圆叶冷水花、江南星蕨、柳叶耳蕨(Polystichum fraxinellum)在中期和后期天坑群落占重要地位, 但这四种喜阴植物或半阴植物重要值随着天坑发育逐渐下降;接骨草、巴郎耳蕨(Polystichum balansae)这两种喜阳、半阴植物则随着天坑的发育重要值逐渐上升。总的来说, 随着天坑发育, 喜阴植物重要值下降, 喜阳、半阴植物重要值上升。
| 时期 Stages |
编号 No. |
物种 Species |
生态习性 Ecological habit |
重要值 Important value/% |
生态位宽度 Niche width |
|
| B(L) | B(SW) | |||||
| 初期 | 01 | 板蓝 Strobilanthes cusia*** | 喜阴植物 | 14.36 | 1.98 | 0.69 |
| Earlier stage | 02 | 短齿楼梯草 Elatostema brachyodontum*** | 喜阴植物 | 13.78 | 4.71 | 1.66 |
| 03 | 水苎麻 Boehmeria macrophylla** | 喜阴植物 | 8.96 | 2.35 | 1.09 | |
| 04 | 变异鳞毛蕨 Dryopteris varia | 半阴植物 | 8.70 | 2.79 | 1.26 | |
| 05 | 深绿卷柏 Selaginella doederleinii** | 喜阴植物 | 5.47 | 3.00 | 1.23 | |
| 06 | 乐业附地菜 Trigonotis leyeensis | 喜阳、半阴植物 | 4.15 | 2.55 | 1.13 | |
| 07 | 长圆楼梯草 Elatostema oblongifolium | 喜阴植物 | 4.01 | 2.87 | 1.19 | |
| 08 | 扇叶铁线蕨 Adiantum flabellulatum | 喜阴植物 | 3.61 | 4.63 | 1.57 | |
| 09 | 五匹青 Pternopetalum vulgar | 喜阴植物 | 3.00 | 1.87 | 0.66 | |
| 10 | 天名精 Carpesium abrotanoide | 喜阳、半阴植物 | 2.16 | 1.67 | 0.59 | |
| 11 | 菊三七 Gynura japonica | 喜阳植物 | 2.14 | 1.00 | 0.00 | |
| 12 | 荩草 Arthraxon hispidus | 喜阳植物 | 1.99 | 1.70 | 0.60 | |
| 13 | 对马耳蕨 Polystichum tsus-simense | 喜阳、半阴植物 | 1.70 | 1.68 | 0.60 | |
| 14 | 大羽短肠蕨 Diplazium megaphyllum | 半阴植物 | 1.70 | 1.00 | 0.00 | |
| 15 | 华鼠尾草 Salvia chinensis | 喜阳、半阴植物 | 1.67 | 2.00 | 0.69 | |
| 中期 | 16 | 板蓝 Strobilanthes cusia*** | 喜阴植物 | 13.94 | 4.68 | 1.58 |
| Middle stage | 17 | 椭圆叶冷水花 Pilea elliptilimba** | 喜阴植物 | 11.42 | 4.01 | 1.49 |
| 18 | 短齿楼梯草 Elatostema brachyodontum*** | 喜阴植物 | 9.26 | 5.21 | 1.72 | |
| 19 | 友水龙骨 Goniophlebium amoenum** | 半阴植物 | 6.44 | 4.91 | 1.60 | |
| 20 | 江南星蕨 Neolepisorus fortunei** | 半阴植物 | 6.07 | 3.57 | 1.33 | |
| 21 | 大瓦韦 Lepisorus macrosphaerus | 半阴植物 | 3.72 | 3.22 | 1.28 | |
| 22 | 水苎麻 Boehmeria macrophylla** | 喜阴植物 | 3.48 | 1.67 | 0.59 | |
| 23 | 接骨草 Sambucus javanica** | 喜阳、半阴植物 | 3.06 | 2.66 | 1.03 | |
| 24 | 土牛膝 Achyranthes aspera | 喜阳植物 | 2.76 | 2.99 | 1.10 | |
| 25 | 多花黄精 Polygonatum cyrtonema | 半阴植物 | 2.69 | 1.00 | 0.00 | |
| 26 | 卵叶盾蕨 Neolepisorus ovatus | 喜阴植物 | 2.52 | 1.81 | 0.78 | |
| 27 | 柳叶耳蕨 Polystichum fraxinellum** | 半阴植物 | 2.42 | 1.55 | 0.54 | |
| 28 | 深绿卷柏 Selaginella doederleinii*** | 喜阴植物 | 1.85 | 1.81 | 0.62 | |
| 29 | 山麦冬 Liriope spicata | 喜阳、半阴植物 | 1.95 | 1.74 | 0.64 | |
| 30 | 巴郎耳蕨 Polystichum balansae** | 喜阳、半阴植物 | 1.69 | 2.65 | 1.04 | |
| 后期 | 31 | 接骨草 Sambucus javanica** | 喜阳、半阴植物 | 8.96 | 2.62 | 1.03 |
| Later stage | 32 | 板蓝 Strobilanthes cusia*** | 喜阴植物 | 7.54 | 2.94 | 1.09 |
| 33 | 毛轴蕨 Pteridium revolutum | 喜阳植物 | 5.11 | 1.00 | 0.00 | |
| 34 | 短齿楼梯草 Elatostema brachyodontum*** | 喜阴植物 | 4.30 | 2.08 | 0.89 | |
| 35 | 深绿卷柏 Selaginella doederleinii*** | 喜阴植物 | 4.22 | 2.99 | 1.10 | |
| 36 | 巴郎耳蕨 Polystichum balansae** | 喜阳、半阴植物 | 3.81 | 3.67 | 1.34 | |
| 37 | 假杜鹃 Barleria cristata | 喜阳植物 | 3.70 | 1.97 | 0.68 | |
| 38 | 剑叶凤尾蕨 Pteris ensiformis | 半阴植物 | 3.24 | 1.99 | 0.69 | |
| 39 | 椭圆叶冷水花 Pilea elliptilimba** | 喜阴植物 | 3.16 | 1.00 | 0.00 | |
| 40 | 五节芒 Miscanthus floridulus | 喜阳植物 | 2.97 | 1.57 | 0.55 | |
| 41 | 柔毛艾纳香 Blumea axillaris | 喜阳植物 | 2.76 | 2.79 | 1.06 | |
| 42 | 阔叶凤尾蕨 Pteris esquirolii | 半阴植物 | 2.55 | 1.00 | 0.00 | |
| 43 | 江南星蕨 Neolepisorus fortune** | 半阴植物 | 2.37 | 1.96 | 0.68 | |
| 44 | 翠云草 Selaginella uncinata | 喜阴植物 | 2.30 | 1.98 | 0.69 | |
| 45 | 柳叶耳蕨 Polystichum fraxinellum** | 半阴植物 | 2.17 | 1.61 | 0.57 | |
| ***: 表示三个时期均有分布且占优势; **: 表示三个时期均有分布且占优势; B(L): Levins生态位宽度指 Levins niche width index; B(SW): Shannon-Wiener生态位宽度指数 Shannon-Wiener niche width index | ||||||
各样地优势草本的生态位宽度(表 3)表明, 在初期天坑, B(L)和B(SW)的变化范围分别在1.000—4.710和0.000—1.660之间, 其中短齿楼梯草、扇叶铁线蕨(Adiantum flabellulatum)、深绿卷柏、长圆楼梯草(Elatostema oblongifolium)、变异鳞毛蕨的生态位宽度较大;中期天坑B(L)和B(SW)的变化范围分别在1.000—5.206和0.000—1.717之间, 其中板蓝、椭圆叶冷水花、短齿楼梯草、友水龙骨、江南星蕨的生态位宽度较大;后期天坑B(L)和B(SW)变化范围分别在1.000—3.665和0.000—1.342之间, 其中巴郎耳蕨、深绿卷柏、板蓝、柔毛艾纳香(Blumea axillaris)、接骨草的生态位宽度较大。由此可见, 天坑各发育时期, 各物种的Levins和Shannon指数生态位宽度变化规律基本一致, 即物种的Levins指数大, 则Shannon指数也大;不同发育时期天坑, 优势草本的生态位宽度存在较大的差异, 后期天坑生态位宽度变化范围较小, 这与重要值的变化结果一致。
2.5 生态位相似性和生态位重叠分析由表 4—表 6可知, 在初期、中期和后期天坑15个优势草本组成的105对中, 生态位相似比例大于0.5的草本分别有18对、30对、26对, 各占总数的17.14%、28.57%、24.76%;生态位相似性比例值为0的草本分别有13对、10对、43对, 各占总数的12.38%、9.52%、40.95%;优势草本之间相似性平均值分别为0.290、0.364、0.272。不同发育时期天坑的优势草本生态位完全重叠大于0.5的种对分别有33对、43对、35对, 分别占总数的31.43%、40.95%、33.33%;生态位完全不重叠为0的种对分别有16对、10对、43对, 分别占总数的15.24%、9.52%、40.95%;优势草本之间生态位重叠平均值分别为0.349、0.450、0.328。生态位重叠值与生态位相似性趋势大致相同, 生态位重叠值较高(低)的种对, 生态位相似性也较高(低)。总体来看, 各发育时期优势草本的生态位重叠值和生态位相似比例平均值都不高(< 0.5), 后期天坑的优势草本生态位重叠值和生态位相似值小于0.001种对数均高达43对。
| 编号No. | 01 | 02 | 03 | 04 | 05 | 06 | 07 | 08 | 09 | 10 | 11 | 12 | 13 | 14 | 15 |
| 01 | 0.233 | 0.346 | 0.054 | 0.592 | 0.184 | 0.090 | 0.124 | 0.583 | 0.000 | 0.420 | 0.000 | 0.420 | 0.322 | 0.000 | |
| 02 | 0.258 | 0.416 | 0.602 | 0.477 | 0.543 | 0.561 | 0.668 | 0.386 | 0.403 | 0.079 | 0.371 | 0.215 | 0.158 | 0.403 | |
| 03 | 0.342 | 0.405 | 0.247 | 0.395 | 0.283 | 0.199 | 0.400 | 0.265 | 0.394 | 0.453 | 0.654 | 0.265 | 0.144 | 0.626 | |
| 04 | 0.039 | 0.659 | 0.206 | 0.248 | 0.395 | 0.760 | 0.699 | 0.105 | 0.307 | 0.076 | 0.307 | 0.441 | 0.000 | 0.307 | |
| 05 | 0.763 | 0.522 | 0.283 | 0.208 | 0.483 | 0.388 | 0.423 | 0.543 | 0.089 | 0.230 | 0.089 | 0.230 | 0.104 | 0.089 | |
| 06 | 0.129 | 0.702 | 0.215 | 0.302 | 0.643 | 0.521 | 0.579 | 0.417 | 0.245 | 0.084 | 0.245 | 0.084 | 0.000 | 0.245 | |
| 07 | 0.067 | 0.670 | 0.063 | 0.910 | 0.367 | 0.575 | 0.717 | 0.309 | 0.122 | 0.000 | 0.122 | 0.366 | 0.000 | 0.122 | |
| 08 | 0.117 | 0.785 | 0.506 | 0.866 | 0.449 | 0.641 | 0.869 | 0.209 | 0.370 | 0.201 | 0.370 | 0.441 | 0.000 | 0.370 | |
| 09 | 0.636 | 0.490 | 0.220 | 0.124 | 0.645 | 0.643 | 0.370 | 0.318 | 0.000 | 0.341 | 0.000 | 0.341 | 0.242 | 0.000 | |
| 10 | 0.000 | 0.718 | 0.514 | 0.406 | 0.167 | 0.288 | 0.194 | 0.494 | 0.000 | 0.276 | 0.568 | 0.145 | 0.000 | 0.768 | |
| 11 | 0.639 | 0.076 | 0.592 | 0.056 | 0.411 | 0.060 | 0.000 | 0.193 | 0.516 | 0.159 | 0.332 | 0.634 | 0.000 | 0.332 | |
| 12 | 0.000 | 0.427 | 0.923 | 0.264 | 0.068 | 0.222 | 0.079 | 0.539 | 0.000 | 0.686 | 0.412 | 0.145 | 0.000 | 0.800 | |
| 13 | 0.557 | 0.212 | 0.371 | 0.548 | 0.358 | 0.031 | 0.473 | 0.470 | 0.450 | 0.082 | 0.801 | 0.213 | 0.000 | 0.145 | |
| 14 | 0.546 | 0.343 | 0.246 | 0.000 | 0.207 | 0.000 | 0.000 | 0.000 | 0.410 | 0.000 | 0.000 | 0.000 | 0.000 | 0.000 | |
| 15 | 0.000 | 0.612 | 0.798 | 0.360 | 0.124 | 0.275 | 0.144 | 0.564 | 0.000 | 0.906 | 0.320 | 0.930 | 0.166 | 0.000 | |
| 物种编号同表 3 Species number saw Table 3; 表中上三角为生态位相似性比例, 下三角为生态位重叠值 | |||||||||||||||
| 编号No. | 16 | 17 | 18 | 19 | 20 | 21 | 22 | 23 | 24 | 25 | 26 | 27 | 28 | 29 | 30 |
| 16 | 0.549 | 0.708 | 0.692 | 0.597 | 0.538 | 0.445 | 0.355 | 0.462 | 0.201 | 0.289 | 0.161 | 0.161 | 0.300 | 0.528 | |
| 17 | 0.668 | 0.576 | 0.605 | 0.424 | 0.590 | 0.346 | 0.696 | 0.353 | 0.071 | 0.359 | 0.212 | 0.212 | 0.353 | 0.276 | |
| 18 | 0.800 | 0.609 | 0.765 | 0.677 | 0.619 | 0.254 | 0.350 | 0.474 | 0.279 | 0.526 | 0.375 | 0.375 | 0.259 | 0.627 | |
| 19 | 0.775 | 0.671 | 0.880 | 0.696 | 0.513 | 0.160 | 0.554 | 0.605 | 0.199 | 0.485 | 0.430 | 0.445 | 0.358 | 0.438 | |
| 20 | 0.720 | 0.419 | 0.850 | 0.819 | 0.372 | 0.258 | 0.408 | 0.621 | 0.379 | 0.668 | 0.363 | 0.363 | 0.482 | 0.395 | |
| 21 | 0.588 | 0.733 | 0.710 | 0.428 | 0.404 | 0.455 | 0.314 | 0.141 | 0.230 | 0.372 | 0.141 | 0.141 | 0.141 | 0.686 | |
| 22 | 0.569 | 0.485 | 0.412 | 0.128 | 0.176 | 0.762 | 0.183 | 0.279 | 0.000 | 0.088 | 0.000 | 0.000 | 0.279 | 0.505 | |
| 23 | 0.403 | 0.828 | 0.466 | 0.688 | 0.473 | 0.370 | 0.108 | 0.490 | 0.000 | 0.289 | 0.473 | 0.307 | 0.657 | 0.000 | |
| 24 | 0.594 | 0.389 | 0.627 | 0.776 | 0.670 | 0.134 | 0.211 | 0.583 | 0.000 | 0.289 | 0.538 | 0.662 | 0.644 | 0.239 | |
| 25 | 0.435 | 0.142 | 0.637 | 0.441 | 0.717 | 0.414 | 0.000 | 0.000 | 0.000 | 0.711 | 0.000 | 0.000 | 0.000 | 0.256 | |
| 26 | 0.493 | 0.283 | 0.734 | 0.582 | 0.857 | 0.464 | 0.043 | 0.244 | 0.212 | 0.956 | 0.201 | 0.201 | 0.289 | 0.256 | |
| 27 | 0.101 | 0.407 | 0.491 | 0.578 | 0.482 | 0.243 | 0.000 | 0.740 | 0.685 | 0.000 | 0.259 | 0.539 | 0.662 | 0.232 | |
| 28 | 0.319 | 0.172 | 0.597 | 0.677 | 0.411 | 0.103 | 0.000 | 0.313 | 0.778 | 0.000 | 0.109 | 0.652 | 0.307 | 0.239 | |
| 29 | 0.295 | 0.507 | 0.427 | 0.552 | 0.599 | 0.226 | 0.164 | 0.824 | 0.736 | 0.000 | 0.294 | 0.853 | 0.361 | 0.000 | |
| 30 | 0.611 | 0.397 | 0.747 | 0.396 | 0.401 | 0.844 | 0.767 | 0.000 | 0.239 | 0.417 | 0.398 | 0.112 | 0.355 | 0.000 |
| 编号No. | 31 | 32 | 33 | 34 | 35 | 36 | 37 | 38 | 39 | 40 | 41 | 42 | 43 | 44 | 45 |
| 31 | 0.581 | 0.000 | 0.354 | 0.573 | 0.712 | 0.217 | 0.740 | 0.511 | 0.217 | 0.427 | 0.217 | 0.431 | 0.217 | 0.525 | |
| 32 | 0.740 | 0.000 | 0.644 | 0.944 | 0.754 | 0.000 | 0.710 | 0.309 | 0.000 | 0.210 | 0.000 | 0.599 | 0.000 | 0.654 | |
| 33 | 0.000 | 0.000 | 0.000 | 0.000 | 0.000 | 0.000 | 0.000 | 0.000 | 0.762 | 0.000 | 0.000 | 0.000 | 0.000 | 0.000 | |
| 34 | 0.307 | 0.780 | 0.000 | 0.700 | 0.515 | 0.000 | 0.354 | 0.148 | 0.000 | 0.206 | 0.000 | 0.717 | 0.000 | 0.354 | |
| 35 | 0.698 | 0.992 | 0.000 | 0.849 | 0.738 | 0.000 | 0.654 | 0.301 | 0.000 | 0.210 | 0.000 | 0.647 | 0.000 | 0.606 | |
| 36 | 0.830 | 0.865 | 0.000 | 0.588 | 0.838 | 0.246 | 0.593 | 0.224 | 0.238 | 0.456 | 0.246 | 0.384 | 0.246 | 0.593 | |
| 37 | 0.214 | 0.000 | 0.000 | 0.000 | 0.000 | 0.288 | 0.000 | 0.000 | 0.238 | 0.790 | 0.435 | 0.000 | 0.991 | 0.000 | |
| 38 | 0.876 | 0.866 | 0.000 | 0.364 | 0.801 | 0.813 | 0.000 | 0.468 | 0.000 | 0.210 | 0.000 | 0.431 | 0.000 | 0.785 | |
| 39 | 0.827 | 0.530 | 0.000 | 0.214 | 0.520 | 0.428 | 0.000 | 0.660 | 0.000 | 0.000 | 0.000 | 0.431 | 0.000 | 0.253 | |
| 40 | 0.104 | 0.000 | 0.955 | 0.000 | 0.000 | 0.140 | 0.182 | 0.000 | 0.000 | 0.238 | 0.238 | 0.000 | 0.238 | 0.000 | |
| 41 | 0.405 | 0.241 | 0.000 | 0.104 | 0.214 | 0.585 | 0.915 | 0.263 | 0.000 | 0.213 | 0.428 | 0.000 | 0.790 | 0.210 | |
| 42 | 0.351 | 0.000 | 0.000 | 0.000 | 0.000 | 0.472 | 0.610 | 0.000 | 0.000 | 0.298 | 0.716 | 0.000 | 0.444 | 0.000 | |
| 43 | 0.499 | 0.716 | 0.000 | 0.871 | 0.791 | 0.504 | 0.000 | 0.399 | 0.604 | 0.000 | 0.000 | 0.000 | 0.000 | 0.253 | |
| 44 | 0.219 | 0.000 | 0.000 | 0.000 | 0.000 | 0.295 | 1.000 | 0.000 | 0.000 | 0.186 | 0.919 | 0.625 | 0.000 | 0.000 | |
| 45 | 0.682 | 0.821 | 0.000 | 0.350 | 0.745 | 0.807 | 0.000 | 0.923 | 0.321 | 0.000 | 0.332 | 0.000 | 0.194 | 0.000 |
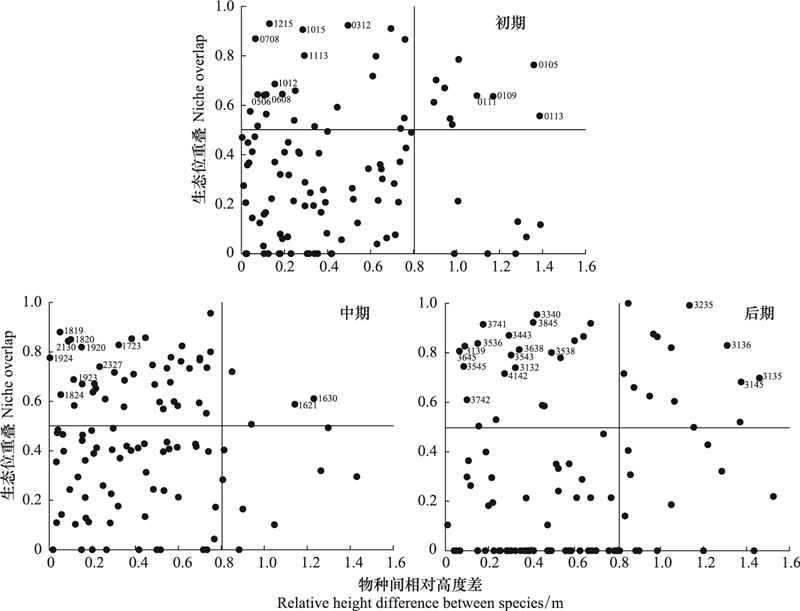
由图 4可明显看出, 中期天坑生态位重叠值大、相对高度差小的(40对)种对数高于初期(23对)和后期天坑(22对)的种对数, 生态位重叠值大且相对高度相差大的种对数则相反, 后期天坑(13对)>初期天坑(10对)>中期天坑(4对)。生态位重叠值大、相对高度差小的优势草本种对中, 初期天坑以喜阳植物种对为主, 占总种对数的39.1%, 如荩草(Arthraxon hispidus)和华鼠尾草(Salvia chinensis)、天名精(Carpesium abrotanoide)和华鼠尾草, 菊三七(Gynura japonica)和对马耳蕨(Polystichum tsus-simense)等;中期天坑多为喜阴与喜阳植物混合种对, 占总种对数的70%, 有椭圆叶冷水花和接骨草、大瓦韦(Lepisorus macrosphaerus)和巴郎耳蕨、接骨草和柳叶耳蕨、友水龙骨和土牛膝(Achyranthes aspera)等;后期天坑以喜阴植物种对为主, 占总种对数的63.6%, 有短齿楼梯草和江南星蕨、剑叶凤尾蕨(Pteris ensiformis)和柳叶耳蕨、深绿卷柏和巴郎耳蕨等种对。生态位重叠值大、相对高度差大的优势草本种对中, 初期天坑有板蓝和深绿卷柏、板蓝和对马耳蕨、板蓝和五匹青(Pternopetalum vulgar)等, 中期天坑有板蓝和巴郎耳蕨、板蓝和大瓦韦等, 后期天坑有板蓝和深绿卷柏、接骨草和深绿卷柏、接骨草和柳叶耳蕨等种对。由此可见, 不同发育时期优势草本生态位重叠值大、相对高度差小的种对数中, 不同生态习性的种对数占比不同, 中期天坑种对数最高;不同发育时期优势草本生态位重叠值大、相对高度差大的种对数差异不大, 但板蓝在各个发育时期与深绿卷柏、耳蕨属等草本生态位重叠值大且相对高度相差大。
草本植物是森林群落的重要组成部分, 在森林生态系统中物种多样性最为丰富, 对环境响应更为敏感[34]。本研究中随着天坑发育到后期, 草本植物Shannon-Wiener多样性指数呈升高趋势。一方面, 因为随着天坑发育成熟, 天坑口部面积增大, 这大大增强了与外部物种的交流, 使得天坑外部地表森林更多的物种能够进入到天坑内部。另一方面, 随着天坑发育, 地下河对坑底作用减弱, 阳光投射增强, 天坑内不同区域和方位所受的能量差异增大, 内部将分裂出更多的微小生境, 促进了天坑内植物多样性的增多。并且, 后期天坑坑底腐殖质堆积(一般可达5—10 cm), 相比初期天坑内大部分为砂岩掺杂为主的石灰岩土来看, 较厚的腐殖质能为植物提供更多的养分。此外, 后期天坑可进入性较强, 受人为干扰较大, 人类活动引起的外来物种入侵会加剧天坑生态环境的退化, 增加天坑原有物种与外来物种之间在资源上的竞争, 加大天坑原始喜湿、喜阴等敏感物种的灭绝风险, 如中期天坑中喜阴湿指示物种天胡荽金腰, 在后期天坑均未发现, 并且在云南沾益天坑群中一些后期天坑内喜阴湿植物已基本消失[35]。因此为了保护天坑原有的生态环境和物种多样性, 需要减少人类活动的对天坑生境的干扰。
均匀度表征的是在物种数一定时观察多样性与最大可能性之比[36], 初期天坑均匀度显著小于后期天坑, 初期天坑草本群落中以少数种居于优势地位。研究表明, 物种数的增加, 均匀度会逐渐提高[37], 初期天坑土壤贫瘠、光资源少、岩石裸露率高等极端恶劣生境, 并不适合植物的生长、发育, 适应性强的物种占绝对优势, 物种数远远少于后期天坑, 这是后期天坑均匀度高的重要原因。由于后期天坑出现退化, 往往一侧内部岩石坍塌形成倒石坡, 在流水冲积下, 土壤加厚且腐殖质堆积, 与初期相比, 岩石裸露率低且土被较为连续, 物种不用集中生长在狭小的斑块上, 使得后期天坑草本分布更均匀。总的来看, Pielou′s均匀度指数后期天坑>中期天坑>初期天坑, 均匀度随天坑发育呈现升高趋势, 表明天坑草本层的物种构成由少数种向多数种转变, 群落逐渐趋向于顶级群落阶段。
3.2 天坑中优势草本的生态位宽度特征物种重要值和生态位宽度通常呈正相关关系, 即重要值和生态位宽度越大, 物种适应环境和利用资源的能力就越强, 在有限的生态空间竞争力越强[38]。本研究中板蓝、短齿楼梯草、水苎麻、变异鳞毛蕨和深绿卷柏等喜阴植物对初期天坑阴暗和土壤贫瘠的环境中具有较强的资源利用和环境适应能力, 在草本层中处于优势地位。随着天坑的发育, 光照时间增长、光资源提高;地下河对天坑作用减弱, 水汽散失、气温上升, 使得天坑的生境发生了巨大的变化。由于草本植物生活史短暂, 林下草本为应对不同发育时期天坑生活环境的变化, 会及时调整自身结构, 也就意味着天坑由喜阴、喜湿物种逐渐向喜阳、耐干物种转变。喜阳植物生态位宽度将不断拓宽, 在群落中能够拥有广阔的可利用资源; 到天坑发育后期, 变异鳞毛蕨、水苎麻和友水龙骨等喜阴植物已完全竞争不过巴郎耳蕨、柔毛艾纳香和接骨草等喜阳植物, 生态位大大缩减, 在群落中失去了主导地位。由此可见, 随着天坑发育, 喜阳植物逐渐取代喜阴植物, 并在群落中占据优势地位;天坑优势草本植物生态位将经历喜阴植物—喜阴、半阴植物—喜阳植物的三个生态型转变过程。
禾本科和菊科能快速成为后期天坑重要的优势科, 除了适宜的生境, 也与自身生物学特性及物种起源密切相关。禾本科起源于热带森林或林缘, 其颖果产生的特殊附属物有助于远距离传播;菊科则利用自身种子小、结实量大且密被冠毛、刺毛、钩等附属物的优势实现自身的远距离传播, 进而快速扩大自身分布范围[39], 占领更多适宜的生存区域。但是鳞毛蕨科、凤尾蕨科和荨麻科重要值依然较高, 主要原因是天坑内部仍然是一个相对封闭和稳定的环境, 与外界地表相比具有较高的湿度、较低的温度和较大的负氧离子浓度[40], 形成了更适合喜阴植物生存的独特小气候。板蓝、短齿楼梯草和深绿卷柏这三种喜阴植物在各个发育时期群落中仍然处于优势地位, 说明这三种植物对天坑极端生境具有极强的适应能力, 且自身具有繁殖速度快、种子生命力旺盛和易传播等生物学特性[41], 使得其种群能够迅速扩张分布和确立优势地位, 属于典型的r对策种, 为天坑优势种。总之, 大石围天坑群以鳞毛蕨科、荨麻科、凤尾蕨科、菊科和禾本科的草本植物为主, 板蓝、短齿楼梯草和深绿卷柏为天坑优势种。
3.3 天坑中优势草本的生态位重叠特征生态位重叠反映了物种的生态位分化状况和种间竞争关系[42], 而生态位相似性是反映物种之间对资源利用相似程度的重要指标[43]。本研究中, 各发育时期草本植物间生态位相似比例和生态位重叠平均值都不高(< 0.5), 表明大石围天坑群中草本层生态分化明显, 对环境资源的利用相似性低, 种间竞争较弱, 群落结构总体较为稳定。天坑森林群落中草本植物矮小、所占生物量低, 通过生态位分化, 利用木本植物剩余的生态位以减少与其之间的竞争;并且在喀斯特天坑土壤稀薄、岩石裸露率高、土被不连续、光照匮乏等恶劣生境下, 使得生境出现破碎化和高异质性, 植物可利用的资源并不充足, 导致天坑内草本层的总体生态位重叠值较低。后期天坑优势草本的生态位相似性比例值小于0.001的种对高达40.95%, 均未出现在同一资源位, 尤其是毛轴蕨、假杜鹃、阔叶凤尾蕨、翠云草(Selaginella uncinata)、五节芒等, 说明这些草本与后期其他草本生态习性和对环境资源要求基本不同, 喜阳植物、半阴植物与喜阴植物对环境要求不同, 与现实相符。本研究还发现, 生态位宽度大的草本, 通常与其他草本的生态位重叠也较大, 但并不是绝对的正相关关系, 如后期天坑的椭圆叶冷水花和柳叶耳蕨等草本植物, 生态位宽度小, 但是生态位重叠较大。这可能与喀斯特地区石芽出露造成土被不连续有关, 环境资源具有高异质性, 物种聚集分布在破碎化生境中, 导致物种间生态位宽度较小但生态位重叠大, 这与钟军弟[44]对广西木论喀斯特地区铁榄群落研究结果相吻合。
3.4 物种间相对高度差与生态位重叠的关联众多研究将样方数作为资源位, 计算两物种间的生态位重叠, 即水平生态位重叠, 而忽略了垂直生态位重叠。垂直生态位重叠是物种在高度发生上的重叠情况, 反映了物种间对垂直空间及光照条件要求上的差异[45], 较早应用于田间实验[46]和群落木本植物[47], 由于垂直生态位重叠结论较为单一且计算复杂, 逐渐运用的少。然而, 天坑作为特殊的塌陷负地形, 光照是重要的生态因子。采用物种间的相对高度差, 不仅有效的代替垂直生态位重叠, 反映群落物种的垂直空间分布和对光能的利用情况, 将物种间的相对高度差与生态位相结合, 更能清晰的揭示物种间对光能的竞争程度。
总体来看, 中期天坑生态位重叠值大、相对高度差小的种对数最高(40对), 表明中期天坑较多优势草本种对生态位相似且植株高度相近, 对光能竞争最为激烈。发育中期是天坑的一个过渡时期, 也是在整个天坑发育过程中, 地质最为壮观且持续时间最短的一个时期, 很多天坑群中并未发现中期天坑的存在。中期天坑坑口扩大, 光照增加, 在初期天坑恶劣生境抑制下的喜阳与半阴植物物种数增多, 重要值迅速上升, 逐渐扩张自身的生态位, 并对占优势地位喜阴植物的生态位进行争夺, 竞争激烈;与初期天坑贫瘠且浅薄的土壤相比, 在流水冲积和植物的演替下, 中期天坑内土壤加厚且养分提高, 一些裸石将被土壤覆盖, 生态位的增加, 也将使得双方对新的生态位展开争夺;但与后期天坑相比, 光照依然匮乏, 此时木本植物生长迅猛, 进一步压缩了原有草本植物的生态位, 木本林冠的伸展也减少了太阳对坑底直接辐射, 使得草本植物对光能竞争更加激烈。有趣的是, 初期天坑荩草和华鼠尾草的生态位重叠值最高(0.930)、相对高度差小(0.13), 表明荩草和华鼠尾草生态位和植株高度基本一致, 两种喜阳植物在初期阴暗环境中竞争激烈;后期天坑生态位重叠值高, 相对高度差小的喜阴植物在光照充足、干旱的生境中争夺着林荫下相同的生态位, 如短齿楼梯草和江南星蕨、大瓦韦和巴郎耳蕨、深绿卷柏和巴郎耳蕨等。由此可见, 在不同发育时期天坑中, 不同生态习性的草本对光能的竞争程度不同, 中期天坑草本植物对光能竞争最为激烈。
板蓝在各个时期与深绿卷柏、巴郎耳蕨和柳叶耳蕨生态位重叠值高, 高度差较大, 表明板蓝与这些草本生态位相似, 对资源利用的程度相似, 并且空间垂直共生为喜阴低矮蕨类提供了较为荫蔽的环境, 对光能的利用具有互补作用并不存在直接的竞争, 而是一种互补的关系。而物种间的生态位重叠值小, 无论植株高度是否相近, 表明物种间生态位不相似, 利用环境资源的能力差异大, 对光能并不存在明显的竞争。
4 结论本文通过对广西大石围天坑群中不同发育时期天坑草本植物多样性和生态位研究表明, 广西大石围天坑群调查样地共记录到草本植物34科71属98种, 以鳞毛蕨科、荨麻科、凤尾蕨科、菊科和禾本科为主, 板蓝、短齿楼梯草和深绿卷柏为天坑优势种。随着天坑的发育, 草本植物的Pielou′s指数、Shannon-Wiener指数呈现显著升高的趋势(P < 0.05), 后期天坑草本植物多样性最为丰富, 分布更为均匀;喜阳植物逐渐取代喜阴植物在群落中占据优势地位, 天坑草本群落将经历喜阴植物—喜阴、半阴植物—喜阳植物的三个生态型转变过程。各发育时期优势草本生态位相似性比例和生态位重叠平均值均 < 0.5, 表明天坑不同发育时期对草本植物的生态位影响较小, 各时期草本层总体上呈现生态分化明显、种间竞争较弱的特点。但在不同发育时期天坑中, 不同生态习性的草本对光能的竞争程度不同, 中期天坑草本植物对光能竞争最为激烈。综上所述, 广西大石围天坑群各发育时期草本层生态分化明显、群落结构稳定, 后期天坑草本多样性最为丰富。此外, 随着天坑森林与外界的交流加深, 内部生境和物种组成将与地表趋于一致, 不在具有独特性, 珍稀植物将逐渐消失[48], “植物避难所”将不复存在, 研究结果将为未来喀斯特天坑草本植物群落构建及对环境响应提供重要的参考。
致谢: 感谢中国乐业-凤山世界地质公园乐业园区雷兰优和刷把村杨胜锋对本研究工作的帮助。| [1] |
崔宁洁, 张丹桔, 刘洋, 张健, 杨万勤, 欧江, 张捷, 宋小艳, 殷睿. 马尾松人工林不同大小林窗植物多样性及其季节动态. 植物生态学报, 2014, 38(5): 477-490. |
| [2] |
姚天华, 朱志红, 李英年, 潘石玉, 孔彬彬, 卫欣华, 杜家丽. 功能多样性和功能冗余对高寒草甸群落稳定性的影响. 生态学报, 2016, 36(6): 1547-1558. |
| [3] |
Rota E, Caruso T, Bargagli R. Community structure, diversity and spatial organization of enchytraeids in Mediterranean urban holm oak stands. European Journal of Soil Biology, 2014, 62: 83-91. DOI:10.1016/j.ejsobi.2014.02.016 |
| [4] |
彭文俊, 王晓鸣. 生态位概念和内涵的发展及其在生态学中的定位. 应用生态学报, 2016, 27(1): 327-334. |
| [5] |
Tilman D. Causes, consequences and ethics of biodiversity. Nature, 2000, 405(6783): 208-211. DOI:10.1038/35012217 |
| [6] |
汤景明, 艾训儒, 易咏梅, 李玲, 徐红梅, 宋亚丽. 鄂西南木林子常绿落叶阔叶混交林恢复过程中优势树种生态位动态. 生态学报, 2012, 32(20): 6334-6342. |
| [7] |
Vannette R L, Fukami T. Historical contingency in species interactions: towards niche-based predictions. Ecology Letters, 2014, 17(1): 115-124. DOI:10.1111/ele.12204 |
| [8] |
Zhao C C, Miao Y, Yu C D, Zhu L L, Wang F, Jiang L, Hui D F, Wan S Q. Soil microbial community composition and respiration along an experimental precipitation gradient in a semiarid steppe. Scientific Reports, 2016, 6: 24317. DOI:10.1038/srep24317 |
| [9] |
陈杰, 郭屹立, 卢训令, 丁圣彦, 苏思, 郭静静, 李乾玺. 伊洛河流域草本植物群落物种多样性. 生态学报, 2012, 32(10): 3021-3030. |
| [10] |
蔡艳, 罗小菊, 王晓双, 王雁青, 王帅, 刘映良. 黔东南州白云岩喀斯特区植物群落演化特征. 西北植物学报, 2019, 39(11): 2064-2071. DOI:10.7606/j.issn.1000-4025.2019.11.2064 |
| [11] |
Carr C A, Krueger W C. Understory vegetation and ponderosa pine abundance in eastern Oregon. Rangeland Ecology & Management, 2011, 64(5): 533-542. |
| [12] |
Lucini F A, Morone F, Tomassone M S, Makse H A. Diversity increases the stability of ecosystems. PLoS One, 2020, 15(4): e0228692. DOI:10.1371/journal.pone.0228692 |
| [13] |
Qian H, Klinka K, Sivak B. Diversity of the understory vascular vegetation in 40 year-old and old-growth forest stands on Vancouver Island, British Columbia. Journal of Vegetation Science, 1997, 8(6): 773-780. DOI:10.2307/3237021 |
| [14] |
蒲高忠, 王柯懿, 莫凌, 曾丹娟, 陈霞霞. 中国喀斯特天坑演化及植被生态系统研究进展. 广西植物, 2021, 41(10): 1632-1643. DOI:10.11931/guihaia.gxzw202012032 |
| [15] |
苏宇乔, 薛跃规, 范蓓蓓, 莫佛艳, 冯慧喆. 广西流星天坑植物群落结构与多样性. 西北植物学报, 2016, 36(11): 2300-2306. DOI:10.7606/j.issn.1000-4025.2016.11.2300 |
| [16] |
黄保健, 张远海, 陈伟海, 韦跃龙, 张晶, 翟秀敏, 罗书文. 广西岩溶天坑资源及其开发利用. 广西科学, 2018, 25(5): 567-578. |
| [17] |
李如友. 地质公园旅游产品开发研究——以广西乐业大石围天坑群国家地质公园为例. 安徽农业科学, 2009, 37(9): 4207-4208, 4239-4239. DOI:10.3969/j.issn.0517-6611.2009.09.137 |
| [18] |
黄保健, 蔡五田, 薛跃规, 朱学稳. 广西大石围天坑群旅游资源研究. 地理与地理信息科学, 2004, 20(1): 109-112. |
| [19] |
朱学稳, 黄保健, 朱德浩, 陈伟海. 广西乐业大石围天坑群发现探测定义与研究. 南宁: 广西科学技术出版社, 2003.
|
| [20] |
冯慧喆. 广西大石围天坑群植物区系的起源和演化研究[D]. 桂林: 广西师范大学, 2015.
|
| [21] |
Jiang C, Feng J, Zhu S F, Shui W. Characteristics of the soil microbial communities in different slope positions along an inverted stone slope in a degraded karst Tiankeng. Biology, 2021, 10(6): 474. DOI:10.3390/biology10060474 |
| [22] |
于燕妹, 黄林娟, 薛跃规. 广西大石围天坑群不同植物群落的特征. 植物生态学报, 2021, 45(1): 96-103. |
| [23] |
Li C Y, Zhang Z H, Wang Z H, Wu Q M. Bryophyte diversity, life-forms, floristics and vertical distribution in a degraded karst sinkhole in Guizhou, China. Brazilian Journal of Botany, 2020, 43(2): 303-313. DOI:10.1007/s40415-020-00607-6 |
| [24] |
Pu G Z, Lv Y N, Dong L N, Zhou L W, Huang K C, Zeng D J, Mo L, Xu G P. Profiling the bacterial diversity in a typical karst Tiankeng of China. Biomolecules, 2019, 9(5): 187. DOI:10.3390/biom9050187 |
| [25] |
黄林娟, 于燕妹, 安小菲, 余林兰, 薛跃规. 广西大石围天坑群天坑森林主要木本植物种间关联性研究. 广西植物, 2021, 41(5): 695-706. |
| [26] |
胡义, 唐力, 张瑜, 王鹏, 李修成, 王研, 姚珊. 小南海天坑群外围次生林植物叶片化学计量特征研究. 陕西林业科技, 2021, 49(4): 14-20. |
| [27] |
Kobal M, Bertoncelj I, Pirotti F, Dakskobler I, Kutnar L. Using lidar data to analyse sinkhole characteristics relevant for understory vegetation under forest cover—Case study of a high karst area in the Dinaric Mountains. PLoS One, 2015, 10(3): e0122070. |
| [28] |
Li C, Zhang Z, Wang Z, Wu Q. Effects of environmental factors and heavy metals on the vertical distribution of bryophytes in a sinkhole environment. Plant Biology, 2020, 22(5): 822-831. |
| [29] |
陈毅萍, 江聪, 简小枚, 税伟, 胡颖, 马婷, 项子源. 云南沾益中度退化天坑草地植物群落水平空间分布特征. 生态学报, 2018, 38(22): 8008-8021. |
| [30] |
范蓓蓓. 广西大石围天坑群天坑植物群落特征及演替研究[D]. 桂林: 广西师范大学, 2014.
|
| [31] |
张金屯. 数量生态学. 北京: 科学出版社, 2004.
|
| [32] |
刘润红, 陈乐, 涂洪润, 梁士楚, 姜勇, 李月娟, 黄冬柳, 农娟丽. 桂林岩溶石山青冈群落灌木层主要物种生态位与种间联结. 生态学报, 2020, 40(6): 2057-2071. |
| [33] |
高添, 徐斌, 杨秀春, 金云翔, 马海龙, 李金亚, 于海达. 内蒙古西部草原地上生物量的遥感估算. 中国沙漠, 2013, 33(2): 597-603. |
| [34] |
Gilliam F S. The ecological significance of the herbaceous layer in temperate forest ecosystems. BioScience, 2007, 57(10): 845-858. |
| [35] |
简小枚, 税伟, 王亚楠, 王前锋, 陈毅萍, 江聪, 项子源. 重度退化的喀斯特天坑草地物种多样性及群落稳定性——以云南沾益退化天坑为例. 生态学报, 2018, 38(13): 4704-4714. |
| [36] |
岳明. 秦岭及陕北黄土区辽东栎林群落物种多样性特征. 西北植物学报, 1998, 18(1): 124-131. |
| [37] |
陈廷贵, 张金屯. 山西关帝山神尾沟植物群落物种多样性与环境关系的研究I. 丰富度、均匀度和物种多样性指数. 应用与环境生物学报, 2000, 6(5): 406-411. |
| [38] |
Boulangeat I, Lavergne S, Van Es J, Garraud L, Thuiller W. Niche breadth, rarity and ecological characteristics within a regional flora spanning large environmental gradients. Journal of Biogeography, 2012, 39(1): 204-214. |
| [39] |
简尊吉, 马凡强, 郭泉水, 秦爱丽, 肖文发. 三峡水库峡谷地貌区消落带优势植物种群生态位. 生态学杂志, 2017, 36(2): 328-334. |
| [40] |
陈伟海, 朱德浩, 朱学稳. 重庆市奉节天坑地缝岩溶景观特征及评价. 地理与地理信息科学, 2004, 20(4): 80-83, 96-96. |
| [41] |
黄红慧, 蒋忠诚, 李先琨, 欧祖兰. 茂兰喀斯特原生林不同地球化学背景下的土壤种子库的初步研究. 地球与环境, 2007, 35(1): 39-45. |
| [42] |
陈丝露, 赵敏, 李贤伟, 范川, 肖宝茹. 柏木低效林不同改造模式优势草本植物多样性及其生态位. 生态学报, 2018, 38(1): 143-155. |
| [43] |
刘润红, 常斌, 荣春艳, 姜勇, 杨瑞岸, 刘星童, 曾惠帆, 傅桂焕. 漓江河岸带枫杨群落主要木本植物种群生态位. 应用生态学报, 2018, 29(12): 3917-3926. |
| [44] |
钟军弟, 李先琨, 叶铎, 向悟生, 吕仕洪, 张建亮. 广西木论国家级自然保护区铁榄群落优势种群的生态位研究. 植物资源与环境学报, 2009, 18(3): 38-43. |
| [45] |
马丽荣, 蔺海明, 陈玉梁, 李荣. 兰州引黄灌区玉米田杂草群落及生态位研究. 草业学报, 2007, 16(2): 111-117. |
| [46] |
肖红, 周启星, 曹莹, 曹志强. 沈阳地区水田主要杂草种群的消长动态及生态位分析. 农村生态环境, 2003, 19(3): 9-13. |
| [47] |
余树全, 李翠环. 千岛湖水源涵养林优势树种生态位研究. 北京林业大学学报, 2003, 25(2): 18-23. |
| [48] |
Huang L J, Yang H, An X F, Yu Y M, Yu L L, Huang G, Liu X Y, Chen M, Xue Y G. Species abundance distributions patterns between Tiankeng forests and nearby non-Tiankeng forests in Southwest China. Diversity, 2022, 14(2): 64. |